코딩 포 로지
Coding for Rosie
— 한 마리 개와 한 사내가 끝까지 함께하는 이야기
폴 코닝햄과 로지에게
생명을 사랑한다는 것이 얼마나 많은 일을 가능하게 하는지, 나는 로지를 통해 비로소 알았다.
프롤로그 — 원반과 봄햇살
멜버른의 봄은 말이 많지 않다. 그냥 온다. 전날까지 잔뜩 흐렸던 하늘이 어느 아침 갑자기 파래진다든지, 유칼립투스 잎에서 뭔가 싱그러운 냄새가 난다든지 하는 식으로 살그머니 와 있다. 포트 필립만에서 불어오는 바람이 그날따라 좀 다르다 싶으면, 그게 봄이다.
폴이 팔을 뒤로 젖혔다.
로지는 이미 알고 있었다. 그 짧고 다부진 몸이 뒷발에 체중을 싣고 살짝 낮아졌다. 주인이 어깨를 뒤로 빼는 순간, 로지의 온몸이 하나의 기대로 팽팽해졌다. 그 기대가 어찌나 순수하고 전적인지, 폴은 그 눈빛을 볼 때마다 왠지 부끄러워지곤 했다. 사람끼리는 서로에게 저런 눈빛을 주기가 어렵다.
파란 원반이 날았다.
멜버른 봄 햇살에 한 번 번뜩이고는 포물선을 그리며 뒷마당 저쪽으로 날아갔다. 로지가 쏘아졌다. 스태퍼드셔 테리어와 샤페이가 반반이라는 그 몸이, 잔디를 박차는 순간 딱 맞는 기계 같았다. 폴은 그 모습을 볼 때마다 가슴이 조금 따뜻해졌다. 개가 전심전력으로 달리는 모습에는 인간에게는 없는 어떤 깨끗함이 있었다.
로지가 공중에 떴다. 주둥이가 원반을 물었다.
"잘했어, 로지!"
로지가 귀를 쫑긋 세우고 달려왔다. 황갈색과 흰색이 섞인 짧은 털, 이마의 굵은 주름, 그 주름 사이에서 빛나는 갈색 눈. 폴이 쭈그려 앉아 원반을 받으면서 로지 목을 두 손으로 감쌌다. 로지가 코를 폴 뺨에 비볐다. 따뜻하고 촉촉한 느낌.
이게 그들의 아침이었다. 이게 그들의 봄이었다.
나중에 폴은 생각했다. 그날 오후가 그들이 함께 누린 마지막 평화로운 날 중 하나였는데, 그 안에 있을 때는 몰랐다고. 행복이란 그런 거라고. 알면서 누리면 이미 조금은 다른 것이라고.
제1장 — 공원에서 온 예감
1 — 낮아지는 것
멜버른 이너 노스의 작은 공원은 아침 일찍이면 개들 차지가 된다. 회사원들이 출근하고 아이들이 등교하기 전의 그 짧은 시간 동안, 공원은 잠깐 개들에게 돌아간다. 조그만 개, 큰 개, 늙은 개, 어린 개들이 각자의 보폭으로 잔디를 가로지르고, 주인들은 그 뒤를 따라가면서 저마다 딴 생각을 한다.
폴과 로지도 매일 아침 이 공원을 찾았다.
폴은 키도 중간이고 체구도 중간쯤이었다. 다부지긴 했지만 날카로운 데가 없어서 전체적으로 둥근 인상이었다. 귀밑에서 슬슬 돋아나는 흰머리가 세련됐다기보다는 그냥 자연스러웠다. 오랫동안 화면을 들여다본 사람에게 생기는 표정이 있다. 어딘가 집중되어 있으면서도 동시에 약간 멍한, 그 두 가지가 기묘하게 섞인 표정. 폴 얼굴에 그게 있었다. 그는 데이터 과학자였다. 기계학습과 인공지능 분야에서 십칠 년을 일한 사람.
하지만 이 아침 공원에서 폴은 그냥 개 주인이었다.
로지가 앞서 갔다. 줄이 팽팽해졌다가 느슨해졌다가를 반복했다. 그 리듬이 폴에게는 일종의 언어로 느껴졌다. 팽팽해지면 뭔가 발견했다는 것이고, 느슨해지면 별거 아니었다는 것이다. 함께 지낸 세월이 쌓이면 그런 게 생긴다.
그날 아침, 줄이 갑자기 확 당겨졌다.
공원 저편 벤치 옆에 비글 한 마리가 있었다. 육칠 개월쯤 된 듯한 어린 놈이었는데, 주인 발 아래 바짝 붙어서 귀를 뒤로 눕히고 있었다. 모든 게 낯설고 무섭다는 게 온몸에서 보였다.
로지가 다가가려 했다. 폴이 줄을 살짝 잡아당겼다. 그러자 로지가 속도를 줄였다. 이게 훈련의 결과인지 신뢰의 결과인지 폴은 몰랐다. 다만 줄을 살짝 당기면 로지가 알아듣는다는 것은 분명히 알았다.
로지가 멈추었다.
그리고 이상한 일이 일어났다. 로지가 몸을 낮추기 시작한 것이다. 앞발부터 시작해서 가슴이, 그리고 턱이 잔디에 닿았다. 배를 깔고 엎드린 채로 로지는 비글 쪽으로 고개만 내밀었다.
나 무섭지 않아. 나 해치려는 거 아니야.
말 대신 몸으로 하는 말이었다. 비글이 코를 킁킁거리면서 조금씩 다가왔다. 로지는 꼼짝도 하지 않았다. 비글이 로지 코에 자기 코를 댔다. 냄새 맡고, 또 냄새 맡고.
그러더니 비글 꼬리가 움직이기 시작했다.
폴은 한참 서서 그 모습을 봤다. 낮아지는 것, 서두르지 않는 것, 상대가 먼저 다가오길 기다리는 것. 개들도 두려움을 녹이는 방법은 결국 그거였다.
그 자세에는 이름이 있다.
앞다리를 뻗고 가슴을 낮추고 엉덩이를 든 채 멈추는 것. 개들은 놀자고 할 때 이 자세를 쓰고, 상대가 겁을 먹었을 때도 쓴다.
뜻은 대체로 하나다. 지금 내가 하는 행동은 진짜가 아니다. 다가가지만 덮치는 것이 아니고, 이빨을 보여도 무는 것이 아니다.
몸을 낮추는 것 말고도 이런 신호가 여럿 있다. 눈을 마주치지 않고 옆으로 돌리는 것. 천천히 곡선을 그리며 다가가는 것. 혀로 코끝을 핥는 것. 아무 이유 없이 하품하는 것.
이 신호들이 공통으로 하는 일이 있다.
결정권을 상대에게 넘긴다. 다가갈지 말지를 상대가 정하게 하고, 그동안 자기는 움직이지 않는다.
로지가 잔디에 턱을 대고 기다린 그 시간이 그것이었다.
저게 사랑이다.
그 생각이 불쑥 폴 가슴을 지나갔다.
2 — 손끝에 걸린 것
돌아오는 길에서였다.
처음엔 몰랐다. 로지는 원래 활발했고 앞서 걷기를 좋아했다. 가끔 땅 냄새에 꽂혀서 멈추는 것도 늘 하던 일이었다. 그러니까 걸음이 조금 느려진 것을 처음엔 그냥 피곤한가 보다 했다.
그런데 로지가 뒷다리를 들었다.
한 걸음 내딛다가 왼쪽 뒷다리를 살짝 들어 올리는 것, 그리고 다음 걸음에서 다시 내딛는 것. 뭔가 잠깐 아팠다가 괜찮아진 것 같은 그 동작이었다.
폴이 멈추었다.
"로지."
로지가 돌아봤다. 눈은 여전히 맑고 밝았다. 폴은 그 눈에서 뭔가 찾으려 했지만, 개 눈이란 언제나 그냥 열려 있을 뿐 자기 고통 같은 건 감추는 법이었다.
폴이 무릎을 꿇었다.
손이 로지 왼쪽 뒷다리를 따라 천천히 내려갔다. 허벅지, 무릎, 정강이. 그리고 손가락 끝에 뭔가가 걸렸다.
작은 혹이었다.
엄지손가락 첫 마디 정도 크기. 손가락으로 눌렀을 때 느껴지는 단단함이 폴 심장을 잠시 멈추게 했다. 로지가 폴 손을 핥았다.
나중에 폴은 그날을 여러 번 되짚게 된다. 언제부터 있었을까. 왜 더 일찍 몰랐을까.
그 물음에는 답이 있다. 이 병이 늦게 발견되는 데는 이유가 있다.
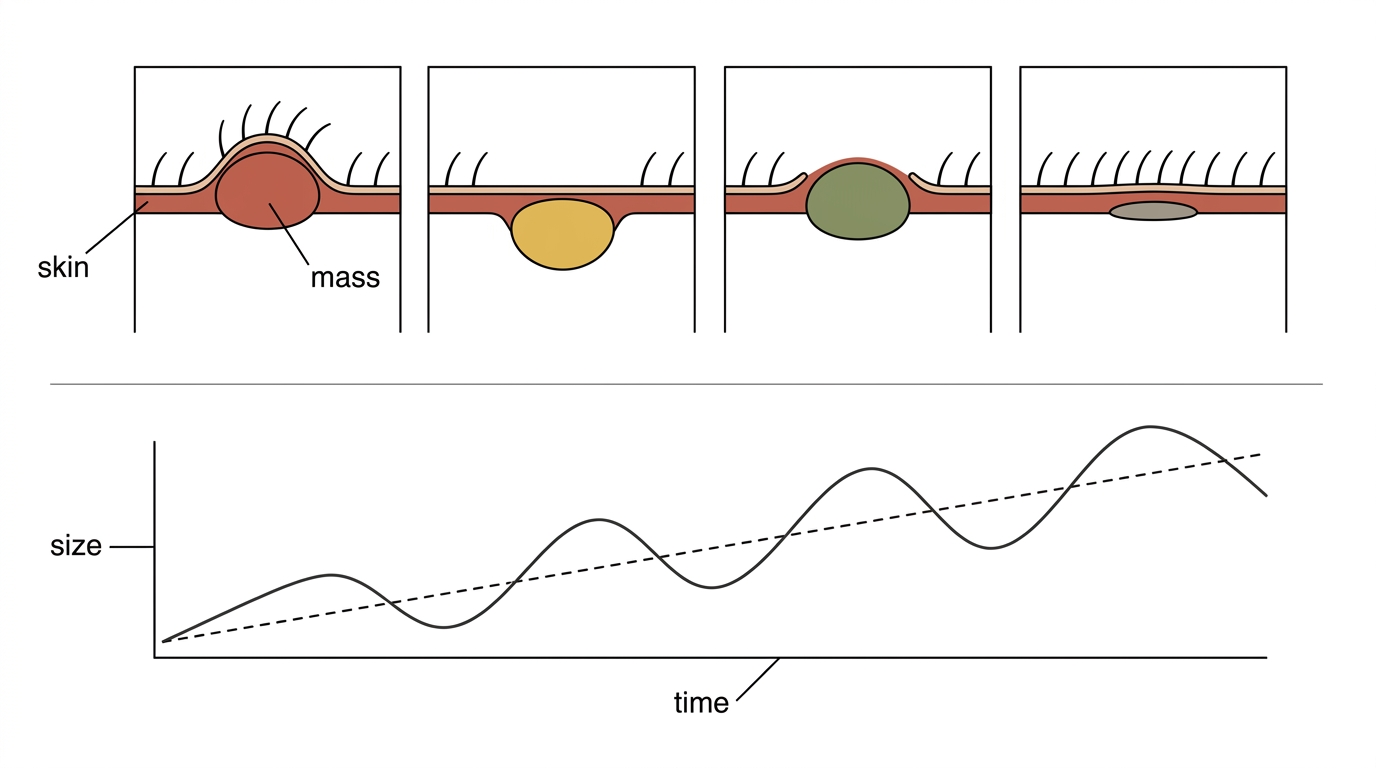
첫째, 겉모습이 정해져 있지 않다. 피부 위로 봉긋 솟은 것도 있고, 피부 밑에 잠겨 만져야만 알 수 있는 것도 있다. 털이 빠져 벌겋게 드러나는 것도 있고, 털에 덮여 아무렇지도 않아 보이는 것도 있다. 사마귀처럼 보이기도 하고 벌레 물린 자국처럼 보이기도 한다.
둘째 — 이쪽이 더 고약한데 — 커졌다 작아졌다 한다.
덩어리가 부풀었다가 며칠 뒤 가라앉는다. 보호자는 그것을 보고 안심한다. 벌레에 물렸나 보다, 이제 괜찮아졌구나.
그런데 그 부풀고 가라앉음은 종양이 줄어드는 것이 아니다. 이 종양이 어떤 세포로 만들어졌는지 때문에 생기는 일이다 — 2장에서 레이첼이 그 세포의 이름을 말해 줄 것이다.
만졌을 때 부푸는 일도 있다. 그래서 자꾸 만져 보는 것이 그 자체로 좋은 생각은 아니다.
셋째, 아프지 않다. 대개는 눌러도 개가 반응하지 않는다.
로지의 경우에는 다리가 먼저 알려 줬다.
혹 자체가 아파서가 아니었다. 뒷다리 바깥쪽에 생긴 덩어리가 걸을 때마다 근육과 피부 사이에서 눌렸고, 그 눌림이 걸음의 한 박자를 어긋나게 만든 것이었다.
한 걸음에 한 번, 살짝 드는 정도의 어긋남. 그것이 신호였다.
폴이 그날 아침 공원에서 본 것 — 줄이 팽팽해졌다 느슨해지는 리듬 — 을 몇 년 동안 읽어 왔기 때문에 그 어긋남이 눈에 걸린 것이었다.
폴은 오래 그 자리에 무릎 꿇고 있었다.
봄의 멜버른이 주위에서 흘러갔다. 자전거 소리, 아이들 웃음소리, 바람에 흔들리는 유칼립투스 소리. 그 모든 것이 갑자기 멀어지면서 폴 손끝에 느껴지는 그 조그마한 이물감만 남았다.
이게 뭔가.
그건 질문이 아니었다. 두려움이었다.
제2장 — 예감의 실체
1 — 진료실
레이첼이라는 수의사였다. 사십 대 초반이었고, 몇 년 동안 폴과 로지를 봐왔기 때문에 그냥 편한 사이였다. 그런데 그날 오후, 레이첼이 청진기를 내려놓고 폴을 바라보는 눈빛이 달랐다. 그 눈빛에서 폴은 좋지 않은 소식을 직감했다.
"솔직하게 말씀드려도 될까요?"
폴이 고개를 끄덕였다. 로지는 진료대 위에서 얌전히 앉아서 가끔 꼬리를 흔들었다. 자기 몸에 무슨 일이 벌어지는지 전혀 모르는 것 같았다.
"이미 세 군데입니다. 왼쪽 뒷다리 하나, 오른쪽 아랫배 하나, 그리고 여기." 레이첼이 로지 왼쪽 앞다리 안쪽을 들어 보였다. 하얗고 부드러운 털 밑에 조그만 혹이 숨어 있었다. "비만세포종으로 보입니다. 조직 검사를 해봐야 확실하지만, 형태나 분포 보면 거의 틀림없어요."
2 — 알레르기 세포가 암이 되면
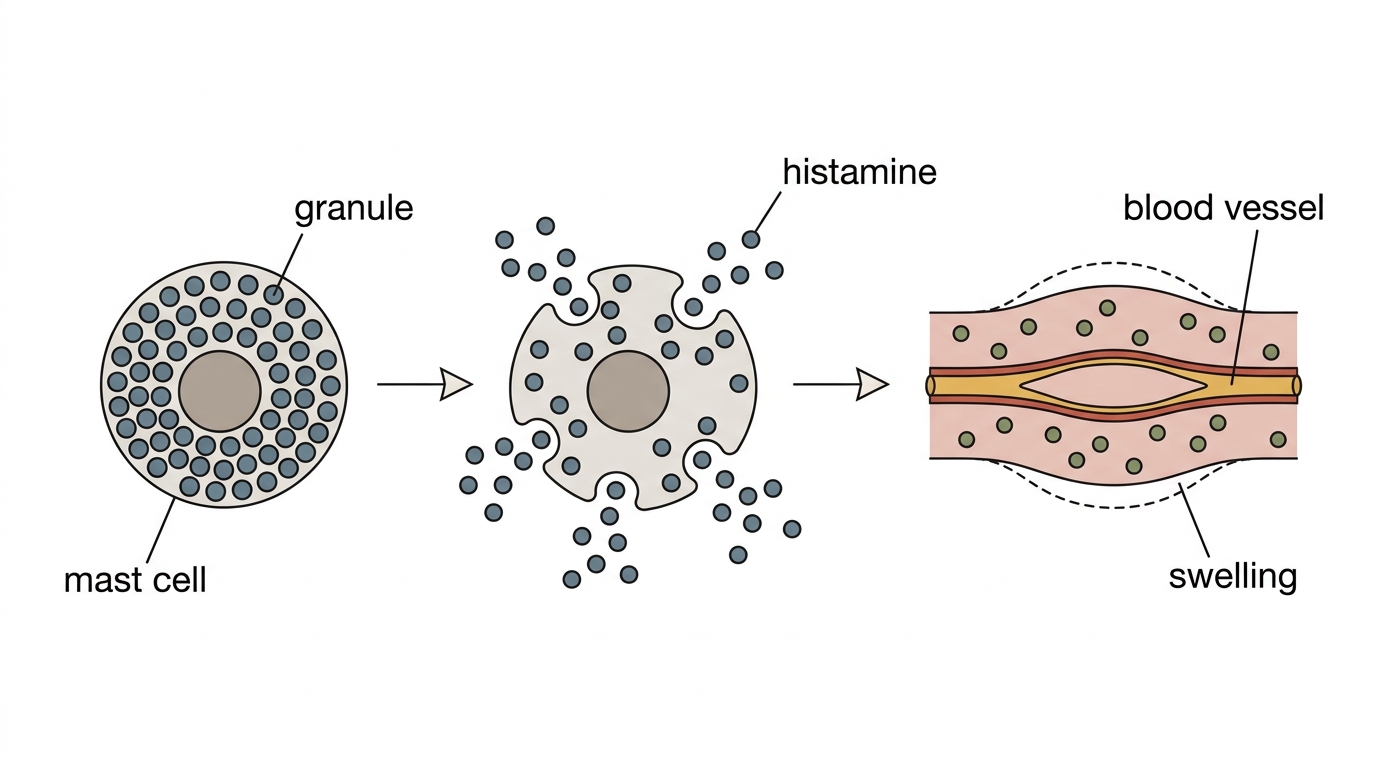
비만세포는 살이 쪄서 붙은 이름이 아니다. 세포 안이 알갱이로 가득 차 있어서 부풀어 보이기 때문에 그렇게 부른다.
이 세포는 피부와 점막에 흩어져 있다. 몸의 가장 바깥, 바깥세상과 닿는 자리다. 문지기다.
알갱이 안에는 히스타민이 들어 있다. 그리고 헤파린, 여러 가지 효소, 신호 물질.
무언가 잘못됐다는 신호를 받으면 이 세포가 알갱이를 한꺼번에 터뜨린다. 이것을 탈과립이라고 한다.
그 결과가 우리가 아는 그것이다. 벌에 쏘인 자리가 붓고 빨개지는 것. 꽃가루에 코가 막히는 것. 심하면 온몸이 붓고 혈압이 떨어지는 것.
그러니까 비만세포는 몸을 지키려고 만들어진 세포다.
그 세포가 암이 되면 다른 암에는 없는 일이 생긴다.
종양이 스스로 히스타민을 뿜는다.
덩어리가 부풀었다 가라앉는 것이 그래서다. 종양 세포들이 알갱이를 터뜨리면 그 자리가 붓고, 잦아들면 도로 작아진다. 크기가 변하는 것이 나아지고 있다는 신호가 아니라 살아 있다는 신호다.
만지면 부푸는 것도 같은 이유다. 자극이 탈과립을 부른다.
그리고 이 성질 때문에 이 병은 덩어리가 있는 자리 말고 다른 데서도 말썽을 일으킨다. 히스타민이 위산 분비를 늘려 위궤양이 생기고, 수술로 종양을 건드리는 순간 히스타민이 한꺼번에 쏟아져 혈압이 떨어지기도 한다.
수의사들이 비만세포종 수술 전에 항히스타민제를 미리 쓰는 것이 그래서다.
비만세포종. 폴은 그 단어를 입안에서 굴려봤다. 데이터 과학자로 살다 보면 모르는 게 나오면 검색부터 하는 버릇이 생긴다. 비만세포종이 뭔지, 개에게서 어떤 경과를 보이는지, 폴은 이미 어렴풋이 알고 있었다.
"몇 기로 보십니까?"
레이첼이 잠깐 머뭇거렸다. "검사를 더 해봐야 하지만... 3기에서 4기 사이입니다. 전이 여부를 확인해야 해요."
3 — 얼마나 퍼졌나, 얼마나 사나운가
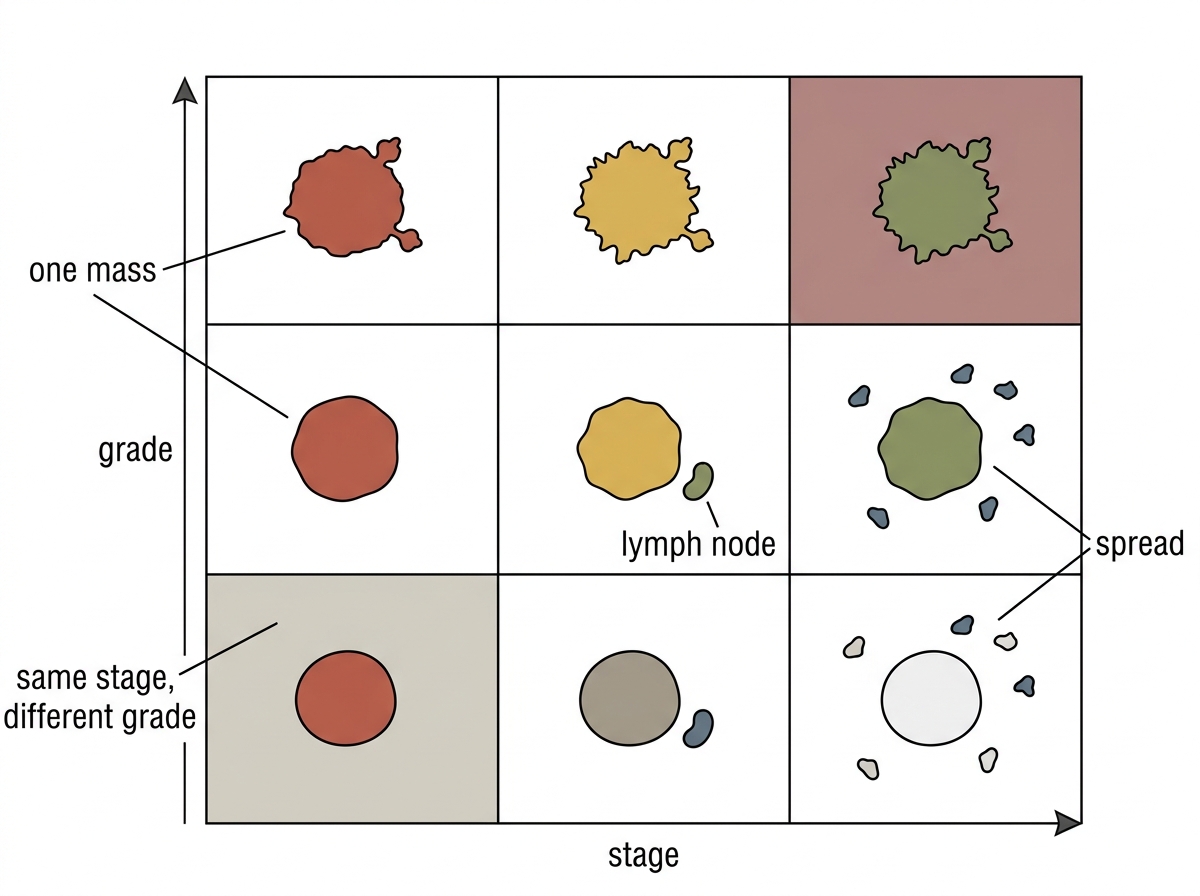
여기서 두 낱말을 갈라 둘 필요가 있다. 뒤에 나오는 이야기의 절반이 이 구분 위에 서 있다.
병기는 얼마나 퍼졌는가다. 덩어리가 하나인가 여럿인가, 가까운 림프절에 갔는가, 다른 장기에 갔는가. 레이첼이 "이미 세 군데" 라고 한 것, "전이 여부를 확인해야 한다" 고 한 것이 이 축이다.
등급은 얼마나 사나운가다. 떼어 낸 조직을 현미경으로 보고, 세포가 얼마나 흐트러져 있는지, 얼마나 자주 나뉘고 있는지를 보고 매긴다.
등급과 병기는 다른 축이다. 한 군데뿐인데 사나운 것이 있고, 여러 군데인데 순한 것이 있다.
그리고 개의 비만세포종에서는 — 이것이 이 병의 특징인데 — 등급 쪽이 앞일을 더 잘 말해 준다.
순한 등급이면 잘라 내는 것으로 끝나는 일이 많다. 사나운 등급이면 잘라 내도 다시 온다.
그런데 등급은 눈으로도, 손으로도, 초음파로도 알 수 없다. 조직을 떼어 유리에 올려 봐야 나온다.
레이첼이 "조직 검사를 해봐야 확실하지만" 이라고 말한 것, "검사를 더 해봐야 하지만" 하고 머뭇거린 것이 그것이었다. 그 순간 그 방에서 아직 아무도 모르는 것이 있었고, 레이첼은 모르는 것을 아는 척하지 않았다.
폴이 검색으로 어렴풋이 알고 있던 것도 딱 여기까지였다. 이름과 대략의 경과.
그 방을 나와서 그가 하게 될 일은, 그 어렴풋함을 숫자로 바꾸는 일이었다.
폴이 로지 등을 쓰다듬었다. 로지가 폴 손에 코를 갖다 댔다.
"치료 옵션은요?"
"수술이랑 항암화학요법이 표준 치료입니다. 수술로 제거한 다음에 항암제로 관리하는 거예요. 이마티닙이나 토세라닙 같은 KIT 저해제가 비만세포종에 꽤 효과적이거든요."
레이첼이 말한 두 약 가운데 하나는 개를 위해 만들어진 것이었다.
토세라닙은 개의 비만세포종을 겨냥해 개발되어 허가를 받은 약이다. 사람 약을 빌려다 쓰는 것이 아니라, 처음부터 개를 위해 만들어져 정식으로 허가된 항암제로는 사실상 첫 사례였다.
이마티닙은 반대다. 사람의 백혈병을 위해 만들어진 약을, 표적이 같으니 개에게도 써 보는 것이다.
표적이 같다는 것이 요점이다. 두 약이 노리는 것은 같은 단백질이다.
KIT.
그 이름이 이 방에서 처음 나왔다. 폴은 그때 그것을 흘려들었다. 넉 달 뒤에 그는 그 네 글자를 화면에서 다시 만나게 된다.
"완치가 됩니까?"
레이첼이 눈빛을 흔들었다. "가능성을 완전히 배제할 수는 없지만... 3기 이상에서는 완치보다는 관리에 초점을 맞추는 게 현실적입니다. 삶의 질을 유지하면서 진행을 늦추는 것, 그게 실질적인 목표예요."
레이첼이 고른 말들을 다시 보면, 그 방에서 그가 무엇을 하고 있었는지가 보인다.
"가능성을 완전히 배제할 수는 없지만." "현실적입니다." "실질적인 목표예요."
확률을 말하고 있었다. 확률은 사람마다 다르게 들린다. 그래서 수의사들은 숫자 대신 이런 말을 쓴다.
폴은 확률을 직업으로 다루는 사람이었다. 그런데 그 자리에서는 그 말이 숫자로 들리지 않았다.
한 가지가 더 있었다.
비만세포종이 잘 생기는 품종이 따로 있다. 복서, 보스턴테리어, 불도그, 퍼그, 래브라도, 스태퍼드셔 테리어, 그리고 샤페이.
목록의 마지막 둘이 로지를 만든 두 품종이었다.
폴이 처음 케이지 앞에서 마음을 뺏겼던 그 이마의 굵은 주름과 다부진 몸이, 그러니까 같은 목록에 함께 실려 있었던 것이다.
그것은 누구의 잘못도 아니었다. 다만 폴은 그 사실을 나중에 알게 되고, 알고 나서도 어디에 둘지 몰라 한동안 그냥 두었다.
폴은 아무 말도 하지 않았다.
"로지가 몇 살이죠?" 레이첼이 조용히 물었다.
"올해 열 살입니다."
"그렇군요." 레이첼이 로지 이마 주름을 살며시 어루만졌다. "좋은 주인 만난 개야, 로지."
5 — 그날 밤
그날 밤 폴은 쉽게 잠이 오지 않았다.
로지는 침대 발치에서 자고 있었다. 규칙적인 숨소리가 어둠 속에서 들려왔다. 그 소리가 이 순간에는 세상에서 제일 안심되는 소리이면서 동시에 제일 불안한 소리였다. 언젠가는 저 숨소리가 멈출 것이라는 사실, 그게 어떤 생명체한테나 피할 수 없는 일이긴 했지만, 그게 이렇게 구체적으로 가까이 느껴진 건 처음이었다.
폴은 천장을 봤다.
그는 데이터를 믿는 사람이었다. 수십만 개 변수를 다루는 모델을 짜고, 그 모델이 현실을 얼마나 잘 예측하는지 따지는 게 일이었다. 그 세계에서 불확실성은 없애야 할 오류가 아니라 정량화해야 할 특성이었다. 감정은 노이즈고, 사실이 신호였다.
그런데 지금 그 모든 합리성이 로지 숨소리 앞에서 속수무책이었다.
내가 할 수 있는 게 있을까.
수의사 말대로 수술하고 항암제 쓰는 것은 '내가 하는 것'이 아니었다. 그건 다른 사람한테 맡기는 것이었다. 폴이 묻는 건, 자기가 십칠 년 동안 갈고닦은 그 기술적인 능력을 동원해서 로지를 위해 직접 뭔가를 할 수 있느냐는 것이었다.
기계학습. 유전체 분석. 인공지능.
그는 일어나서 노트북을 열었다.
제3장 — 여덟 해 전의 일
1
그런데 여기서 잠깐 뒤로 가야 한다. 폴이 노트북을 열기 전에, 그의 마음속에서 먼저 재생된 기억이 있기 때문이다.
여덟 해 전 어느 토요일 오전이었다.
그때 폴은 서른여섯이었고, 멜버른 북부 교외의 조그만 아파트에 혼자 살고 있었다. 회사를 공동창업한 게 이 년 전이었고, 이제 막 흑자가 났다. 생활은 안정됐는데 뭔가 텅 빈 느낌이 자꾸 왔다. 외로운 건지 무료한 건지 딱히 뭐라 이름 붙이기도 어려운 그 감각.
그날 동물 보호소를 찾아간 건 충동적인 결정이었다.
담당자가 케이지 앞으로 안내하면서 말했다.
"이 아이는 남서부 관목 지대에서 구조됐어요. 유기된 것 같고요, 나이는 두 살 정도로 봅니다. 스태퍼드셔랑 샤페이 혼혈이에요. 피부에 약간 문제가 있어서 입양이 쉽지 않을 수 있거든요."
케이지 안에 개 한 마리가 웅크리고 있었다. 황갈색과 흰색이 섞인 털, 샤페이에게서 물려받은 이마 주름, 앞다리 바깥쪽에 희미하게 남은 흉터들. 오래전에 아문 것들이었지만, 그 흔적들이 이 동물의 과거에 대해 뭔가 말하고 있는 것 같았다.
그런데 그것보다 폴 눈을 잡아끈 건 다른 것이었다.
개가 그를 보고 있었다.
낯선 사람이 다가오면 짖거나 물러서는 게 대부분 유기견들이 하는 일이다. 그런데 이 개는 오히려 폴을 정면으로 바라보고 있었다. 두렵지도, 공격적이지도 않은 어떤 눈빛. 당신이 어떤 사람인지 판단해보겠다는 것인지, 아니면 당신이 괜찮은 사람이기를 바라는 것인지, 그 둘이 뒤섞인.
폴이 손을 내밀었다.
개가 코를 내밀었다. 냄새 맡고, 또 맡고. 그리고 혀를 내밀어 폴 손가락 끝을 핥았다.
그 순간에 결정이 났다.
2
폴은 그 개에게 로지라는 이름을 지어줬다.
처음 며칠은 서먹서먹했다. 로지가 아파트 구석구석을 냄새로 뒤졌고, 부르면 오긴 했지만 아직 완전히 긴장을 풀지는 못했다. 담당자가 얘기했던 피부 문제도 실제로 있었다. 양쪽 앞다리 피부가 부분적으로 두껍고 거칠었고, 흉터 근처 털이 얇아서 맨살이 드문드문 보였다.
수의사는 경미한 피부 알레르기와 과거 외상 흔적이라고 했다. 치료가 필요한 수준은 아니었다. 그래도 폴은 가끔 로지 앞다리를 손바닥으로 감싸 쥐면서 이 흉터들이 생기던 시절을 생각했다. 그게 어떤 시절이었는지는 알 수 없었고, 알 필요도 없었다. 중요한 건 그 시절이 끝났다는 것이었다.
여덟 해 뒤에 폴은 그 진단서를 다시 꺼내 보게 된다.
경미한 피부 알레르기. 그 말이 그때는 아무것도 아니었다.
알레르기 반응을 일으키는 세포가 비만세포다. 로지의 앞다리 피부가 두껍고 거칠었던 것은 그 세포들이 오래 일해 왔다는 뜻이기도 했다.
그리고 여덟 해 뒤에 로지에게 생긴 것이 그 세포의 종양이었다.
둘이 이어져 있는가. 오래 자극받은 조직에서 암이 생기기 쉽다는 것은 여러 곳에서 알려져 있고, 그래서 그럴듯한 이야기가 만들어진다.
다만 개의 피부 알레르기가 비만세포종으로 이어진다는 것은 확인된 적이 없다. 그럴듯한 것과 밝혀진 것은 다르다.
폴은 나중에 그것을 여러 번 찾아봤고, 매번 같은 자리에서 끝났다. 아무도 모른다는 것이 답이었다.
그때는 그냥, 앞다리가 조금 거친 개였다.
네 해 뒤에 팬데믹이 왔다.
아이러니하게도, 그건 폴과 로지한테 선물이었다.
사무실 출근이 없어지고 재택근무가 일상이 된 그 시절에 폴과 로지는 하루 종일 함께 있었다. 폴이 회의할 때 로지는 발치에 누워 있었고, 폴이 커피 마실 때 로지는 창가에서 햇살을 쬐었다. 저녁에 공원 걷고, 밤엔 같은 방에서 잤다. 그 이 년 동안 그들은 서로 리듬을 완전히 익혔다.
로지는 그냥 폴 가족이 됐다. 그건 비유가 아니었다.
3
그러니까 일 년 반 뒤 그 밤, 노트북 앞에 앉은 폴 마음속에서 움직이는 건 단순한 걱정 이상의 무언가였다. 세속적인 말로는 다 표현이 안 되는 어떤 책임감 같은 것이었다.
로지는 그에게 맡겨진 존재였다. 보호소 케이지에서 코를 내밀어 그 손가락을 핥던 그 순간부터, 로지는 폴에게 자기를 맡긴 것이었다. 당신이 괜찮은 사람이기를 바라는 그 눈빛으로.
폴은 그 신뢰를 저버릴 수 없었다.
그는 ChatGPT 창을 열었다.
제4장 — 디지털 오라클에게 묻다
1 — 새벽 두 시
인공지능과 나누는 대화가 어떤 성격의 것인지에 대해 철학자들은 아직 합의하지 못했다. 그것이 진짜 사고의 교환인지, 아니면 그런 것처럼 보이는 처리 과정인지. 폴한테는 그런 논쟁이 그날 밤 별로 중요하지 않았다. 대화를 나누고 나서 그의 생각이 명확해졌다. 그것으로 충분했다.
폴:  내 개가 비만세포종 3기에서 4기 사이로 진단받았습니다.
     열 살이고, 수술과 항암화학요법이 제시됐는데,
     더 근본적인 접근이 가능한지 알고 싶습니다.
     데이터 과학자로서 내가 할 수 있는 게 있을까요?

AI:  흥미로운 질문입니다. 현재 암 치료에서 가장 전망 있는
     분야 중 하나가 개인 맞춤형 면역치료입니다. 특히
     mRNA 기반 종양 특이적 백신은 최근 인간 임상 시험에서
     주목할 만한 결과를 보이고 있습니다.

     핵심 원리는 이렇습니다. 각 종양에는 정상 세포와
     다른 돌연변이가 있고, 이 돌연변이에서 생긴 비정상
     단백질 조각 — 신생항원(neoantigen) — 이 면역계가
     인식하고 공격할 수 있는 표적이 됩니다. mRNA 백신은
     이 신생항원 정보를 세포에 전달해서 면역 반응을
     유도하는 것입니다.

     데이터 과학자로서 이게 가능한 이유는, 전체 유전체
     시퀀싱 데이터를 분석해서 신생항원을 예측하는 과정이
     본질적으로 생물정보학적 파이프라인이기 때문입니다...
폴은 화면을 뚫어지게 봤다.
mRNA 백신.
그 단어가 박혔다. 팬데믹 시절에 그는 mRNA 백신 기술에 관한 논문을 수십 편 읽었다. 카탈린 카리코와 드루 와이스먼의 연구, BioNTech와 Moderna의 개발 과정. 작동 원리가 놀랍도록 단순하면서 우아하다고 생각했었다. 그 기술을 개인 종양에 맞춤화해서 개한테 쓴다는 생각은 그때까지 한 번도 해본 적이 없었다.
폴:  구체적으로 어떤 단계가 필요합니까?

AI:  먼저 종양 조직과 정상 혈액의 전체 게놈 시퀀싱이
     필요합니다. 두 샘플을 비교해서 종양에서만 생긴
     체세포 돌연변이를 찾아내는 거예요.

     다음으로, 이 돌연변이 중에서 MHC 분자와 결합할
     수 있는 신생항원을 예측합니다.
     NetMHCpan 같은 알고리즘이 그 역할을 합니다.

     세 번째로, 선별된 신생항원 서열을 담은 mRNA를
     합성하고, 이것을 지질 나노입자에 넣어서 전달
     시스템을 만듭니다...
폴은 새벽 두 시까지 그 대화를 이어갔다.
2 — 확인할 수 없는 대답
그날 밤 폴이 한 일에는 문제가 하나 있었다.
그는 자기가 확인할 수 없는 분야에 대해 묻고 있었다.
언어 모델은 맞는 말과 그럴듯한 말을 같은 어조로 한다. 모르는 것을 모른다고 말하는 대신, 아는 것과 똑같이 매끄러운 문장으로 채워 넣는다. 학술지 이름을, 저자 이름을, 있지도 않은 숫자를 그렇게 만들어 낸다.
그런데 그것이 틀렸는지 알아보려면 그 분야를 이미 알아야 한다.
폴은 몰랐다. 그날 밤 화면에 뜬 문장 가운데 어느 것이 문헌에 있는 것이고 어느 것이 지어낸 것인지 가릴 방법이 그에게는 없었다.
그러니까 그가 그날 밤 얻은 것은 답이 아니었다.
낱말이었다.
신생항원. 체세포 변이. MHC. 지질 나노입자. 전체 게놈 시퀀싱.
모르는 분야에 들어갈 때 가장 어려운 것은 답을 찾는 일이 아니다. 무엇을 물어야 하는지 아는 일이다. 검색창은 이미 아는 말만 받아 준다. 그 말을 모르면 검색이 시작되지 않는다.
그날 밤의 대화가 준 것은 검색창에 넣을 말이 생긴 것이었다.
그리고 그 낱말들이 진짜인지는, 다음 날부터 그가 직접 확인하게 된다.
3 — 논문
다음 날 아침, 폴은 생물정보학 논문들을 읽기 시작했다.
그가 훈련받은 분야는 기계학습이었지 생물학이 아니었다. 그러나 데이터를 다루는 논리는 어떤 분야든 비슷하다. 도메인 지식은 논문으로 채울 수 있다. 오히려 전공자가 갖는 고정관념이 없다는 게 가끔 도움이 된다.
그는 먼저 비만세포종의 유전체학 논문들을 찾아봤다. KIT 유전자 변이가 개 비만세포종의 주요 원인이라는 것을 알았다. KIT 단백질은 세포 표면에서 성장 신호를 받아들이는 수용체인데, 여기에 특정 돌연변이가 생기면 신호가 없어도 항상 켜진 상태가 된다. 스위치가 고장난 것이다.
그 다음에는 mRNA 백신 설계 논문들을 읽었다. 신생항원 예측 알고리즘들을 비교했다. 지질 나노입자 제조 방법을 공부했다.
논문을 읽는 일이 확인이었다.
AI가 말한 낱말 하나를 검색창에 넣으면 실제 논문이 나오거나 나오지 않는다. 나오면 진짜다. 나오지 않으면 지어낸 것이다.
그런 식으로 그는 그날 밤의 대화를 한 줄씩 검증해 나갔다. 대부분은 실재하는 것이었고, 몇 가지는 어긋나 있었고, 몇 가지는 이미 낡은 것이었다.
스스로 확인할 수 없는 분야에서 AI에게 물어도 되는 경우가 있다면, 그것은 답을 그대로 쓰지 않고 어디를 찾아볼지에만 쓸 때다.
일주일이 지났다.
폴은 노트북에 파이프라인 개요를 그렸다. 거칠고 불완전했지만, 뭔가 보이기 시작했다. 이걸 혼자 다 할 수는 없었다. 게놈 시퀀싱 전문가, RNA 합성 전문가, 동물 임상 전문가가 필요했다. 그러나 그것은 나중에 생각할 문제였다.
그 종이에 그려진 것이 이 책의 나머지다.
시퀀싱 · 정렬 · 변이 찾기 · 신생항원 고르기 · 서열 설계 · mRNA 합성 · 지질 나노입자 · 투여 · 확인.
아홉 칸이었고, 폴이 혼자 할 수 있는 것은 그중 가운데의 네 칸이었다.
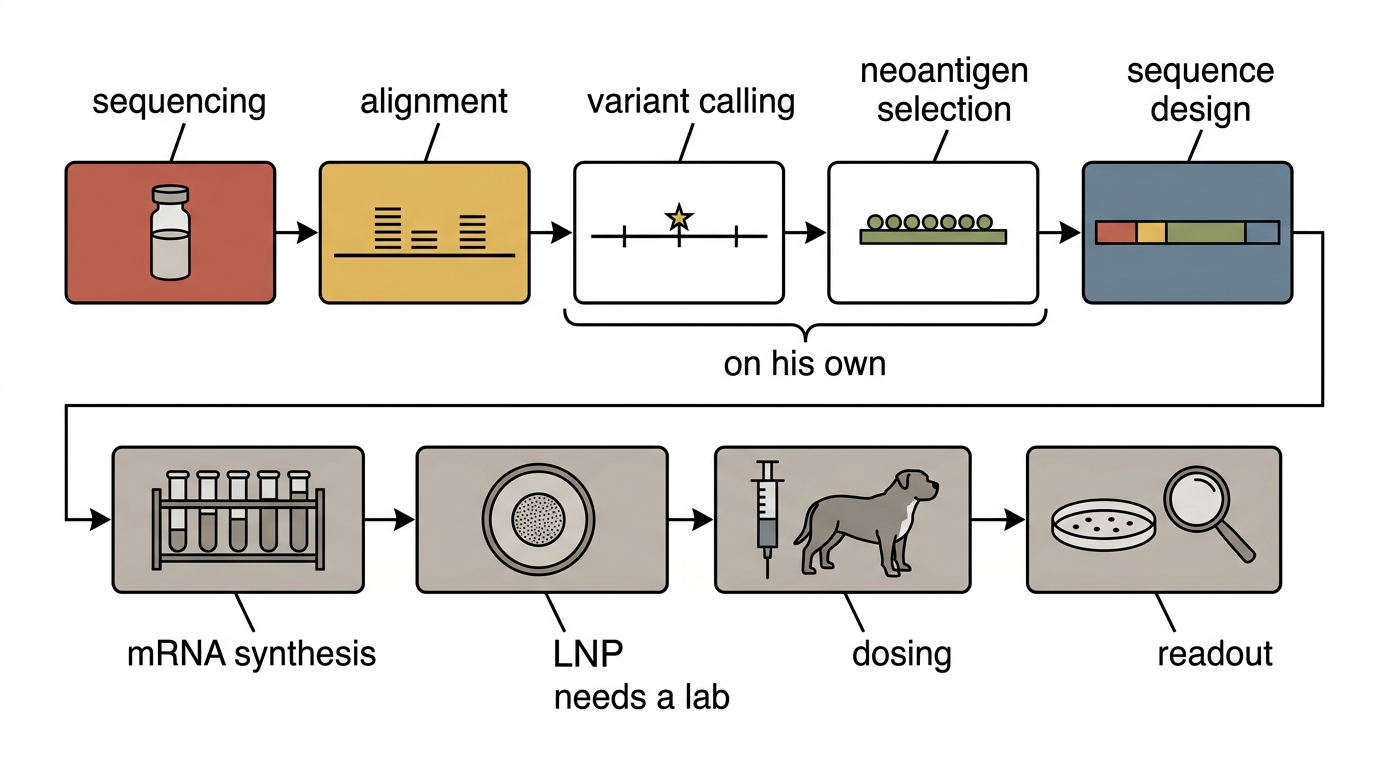
앞의 두 칸은 장비가 있어야 했다. 뒤의 세 칸은 실험실과 자격이 있어야 했다.
폴이 그날 밤 알게 된 것은 무엇을 해야 하는지가 아니라, 누구를 찾아야 하는지였다.
지금은 먼저 로지의 종양 DNA를 시퀀싱해야 했다.
제5장 — 마틴 스미스에게 이메일을 보내다
1 — 사흘
이메일을 쓰는 데 사흘이 걸렸다.
내용이 복잡해서가 아니었다. 내용은 간단했다. 문제는 이 이메일을 받는 사람 — UNSW Ramaciotti 유전체학 센터의 마틴 스미스 부교수 — 이 왜 개인의 반려견을 위한 맞춤형 mRNA 백신 프로젝트에 협력해야 하는지 설득하는 것이었다.
합리적인 거절 사유는 충분했다. 전례가 없는 일이었다. 학문적 의미가 불분명했다. 실제로 쓸 수 있는 결과가 나올지도 불확실했다. 그리고 무엇보다, 이건 개 이야기였다.
사흘이 걸린 것은 그 거절 사유들을 하나씩 없애는 데 걸린 시간이었다.
모르는 사람에게 보내는 부탁 편지가 읽히는 데는 대체로 같은 조건이 붙는다.
무엇을 해 달라는 것인지가 한 문장으로 나와 있을 것. 막연히 "조언을 구한다" 는 부탁은 받는 사람이 무엇을 해야 할지 모르므로 답장이 어렵다.
보내는 쪽이 이미 무언가를 해 두었을 것. 아무것도 하지 않은 사람의 부탁과, 절반을 해 놓고 막힌 사람의 부탁은 다르게 읽힌다.
무엇을 모르는지 적어 둘 것. 아는 척한 자리는 전문가에게 곧바로 보인다.
그리고 짧을 것.
폴의 이메일은 그 조건들을 맞추고 있었다. 사흘은 그것을 맞추는 데 걸린 시간이었다.
그러나 폴은 이메일을 보냈다.
제목: 개 비만세포종 mRNA 백신 개발 협력 가능성에 대해

마틴 교수님께,

저는 폴 코닝햄이라고 합니다. 데이터 과학자이고,
Core Intelligence Technologies 공동창업자입니다.

제 개 로지가 비만세포종 3~4기로 진단받았습니다.
저는 전체 게놈 시퀀싱을 통해 종양 특이적 신생항원을
발굴하고, 이를 기반으로 개인 맞춤형 mRNA 백신을
설계하는 것이 가능한지 탐색하고 싶습니다.

물론 이런 요청이 이례적이라는 것을 압니다.
그러나 이 프로세스 자체가 학문적으로 흥미로울 수 있고,
성공한다면 수의학과 인간 의학 모두에 시사점이
있을 수 있다고 생각합니다.

15분만 통화할 수 있을까요?

폴 드림
3 — 화요일
마틴이 다음 날 답장을 보냈다.
"흥미롭네요. 화요일에 시간 됩니다."
폴은 화요일 밤새 준비했다. 생물정보학 파이프라인 개요, 관련 논문 요약, 예상 비용과 일정. 그것이 완벽하지 않다는 건 알았다. 중요한 건 완벽함이 아니라 진지함이었다.
화요일 화상통화에서 마틴은 처음 삼십 분 동안 날카로운 질문들을 던졌다. 개의 MHC 유형이 인간과 다르다는 점을 고려했는가. CanFam3.1 참조 게놈에 대한 이해가 있는가. GATK 파이프라인에서 개 게놈의 특수성을 어떻게 다룰 것인가.
4 — 세 질문
그 삼십 분 동안 마틴이 던진 질문 셋은 아무렇게나 고른 것이 아니었다.
첫째. 개의 MHC가 사람과 다르다는 것을 고려했는가.
신생항원을 고르는 일은 결국 어떤 조각이 MHC 홈에 들어맞는지를 맞히는 일이다. 그 예측 도구들은 사람의 자료로 만들어졌다. 개의 것을 넣으면 숫자는 나오지만, 그 숫자가 사람에서만큼 믿을 만한지는 다른 문제다.
이 질문은 폴이 도구를 그대로 쓸 수 있다고 믿고 있는지를 본 것이었다.
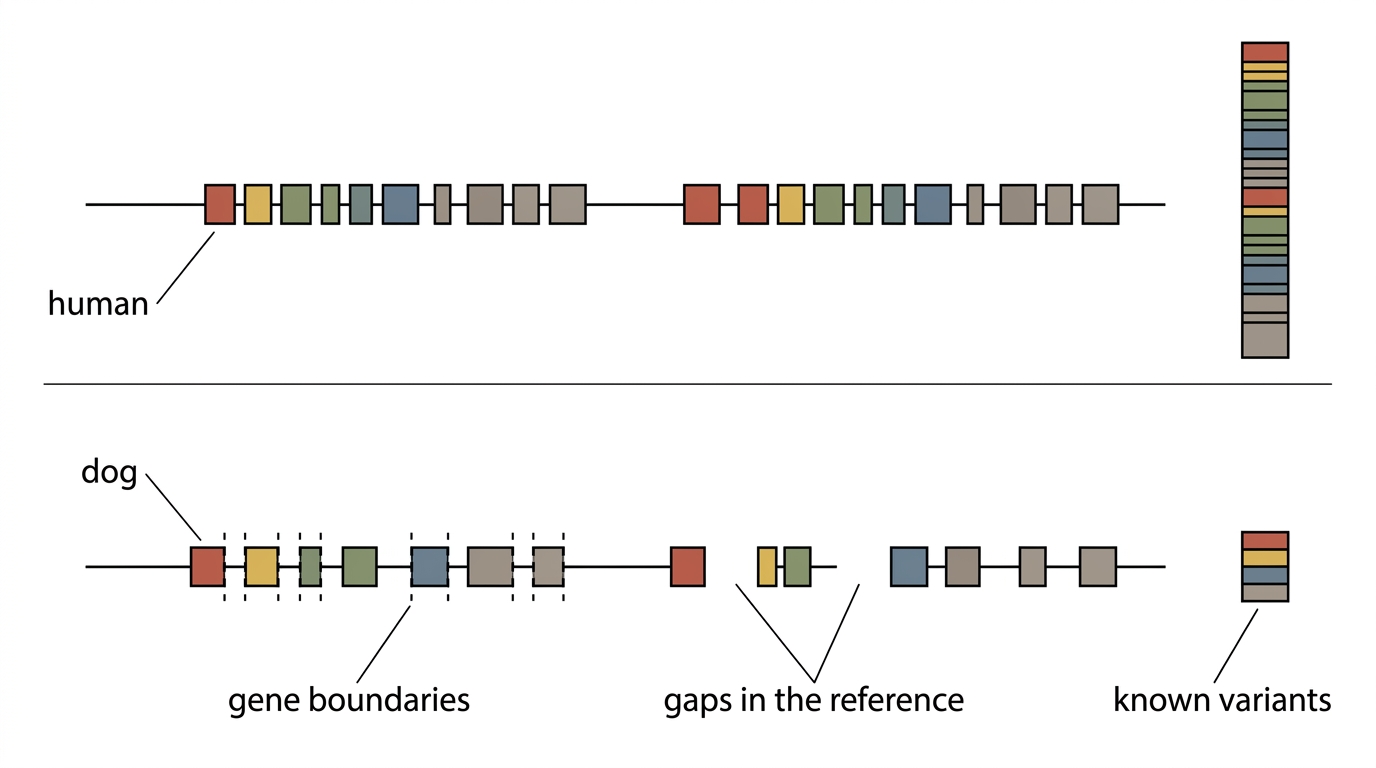
둘째. CanFam3.1 참조 게놈을 이해하고 있는가.
참조 게놈은 정답이 아니다. 어느 한 개체의 서열을 정리해 둔 것이고, 정리된 정도가 종마다 다르다.
사람의 참조 게놈은 수십 년 동안 다듬어졌다. 유전자의 경계가 어디인지, 어느 구간이 무엇을 하는지가 촘촘하게 적혀 있다. 알려진 변이를 모아 둔 데이터베이스도 크다.
개의 것은 그만큼 다듬어지지 않았다. 아직 채워지지 않은 구간이 있고, 유전자의 경계가 덜 정확하고, 무엇보다 알려진 변이 목록이 훨씬 작다.
셋째. GATK 파이프라인에서 개 게놈의 특수성을 어떻게 다룰 것인가.
앞의 두 질문이 여기서 만난다.
GATK의 여러 단계는 알려진 변이 목록이 있다는 전제 위에 만들어져 있다. 장비의 품질 점수를 보정하는 단계가 그렇다. 이미 알려진 자리를 빼고 남은 차이를 오류로 보고 그 오류의 패턴을 학습해 점수를 고치는 방식이다.
개에는 그 목록이 빈약하다. 그러면 진짜 변이가 오류로 분류되고, 그 오류 패턴이 다시 점수를 망가뜨린다.
그래서 개 게놈에서는 그 단계를 건너뛰거나 다른 방법으로 대신한다. 사람 데이터로 쓰던 파이프라인을 그대로 돌리면 안 된다.
세 질문의 공통점이 있었다.
도구가 사람을 위해 만들어졌다는 것.
그리고 폴이 하려는 일은 개에게 하는 일이라는 것.
폴은 모든 질문에 답하지 못했다. 하지만 어떤 질문에 답하지 못하는지는 정확히 알았고, 그것을 솔직하게 말했다.
그것이 마틴이 실제로 시험한 것이었을 것이다.
셋 다 답할 수 있는 사람이라면 마틴이 필요하지 않다. 셋 다 답할 수 있는 척하는 사람과는 함께 일할 수 없다.
어느 것을 모르는지 아는 사람하고는 일할 수 있다.
마틴이 잠시 침묵하다가 말했다.
"한번 해봅시다. 대신 이건 제대로 해야 합니다. 학문적으로 엄정하게."
"물론입니다." 폴이 말했다.
그날 밤 폴은 로지와 함께 소파에 앉았다. 로지가 폴 허벅지에 머리를 얹었다.
"마틴 교수님이 돕겠대, 로지."
로지가 꼬리를 흔들었다.
제6장 — 200기가바이트의 세계
1 — 파일 네 개
로지의 종양 조직 생검과 혈액 채취가 끝났다.
UNSW Ramaciotti 센터로 샘플이 보내졌다. 시퀀싱 비용이 3,000 호주달러였다. 폴은 망설임 없이 카드를 긁었다.
3주 뒤, 폴의 이메일에 용량 알림이 떴다. 파일 네 개가 도착해 있었다. 각각 수십 기가바이트. 합치면 약 200기가바이트. 로지의 혈액 게놈과 종양 게놈을 읽어낸 원시 데이터였다. FASTQ 형식이었다. 각 DNA 조각의 염기 서열과 그 신뢰도가 기록된 파일들.
파일이 왜 넷인지부터.
둘은 혈액에서, 둘은 종양에서 왔다. 그리고 각 샘플마다 파일이 둘인 것은, 시퀀싱 장비가 DNA 조각 하나를 양쪽 끝에서 읽기 때문이다. 앞에서 150글자, 뒤에서 150글자. 그 둘을 따로 담아 R1과 R2라고 부른다.
가운데는 읽지 않는다. 그런데 두 끝이 한 조각에서 나왔다는 것을 알고 있으므로, 나중에 맞출 때 그 사실이 단서가 된다.
FASTQ 파일 안은 네 줄이 한 묶음이다.
첫 줄은 이름. 둘째 줄은 읽어낸 염기 서열 — ACGT 백오십 글자. 셋째 줄은 자리를 채우는 줄. 넷째 줄은 그 글자 하나하나를 얼마나 믿는지를 적은 줄이다.
넷째 줄이 이 형식의 요점이다.
염기 하나마다 품질 점수가 붙는다. 30이면 이 글자가 틀렸을 확률이 천 분의 일. 20이면 백 분의 일. 그 점수를 숫자로 적으면 파일이 너무 커지므로 글자 하나로 바꿔 적는다. 그래서 서열 줄과 품질 줄의 길이가 같다.
200기가바이트의 절반은 그 품질 줄이다. 무엇을 읽었는지가 절반, 그것을 얼마나 믿는지가 절반.
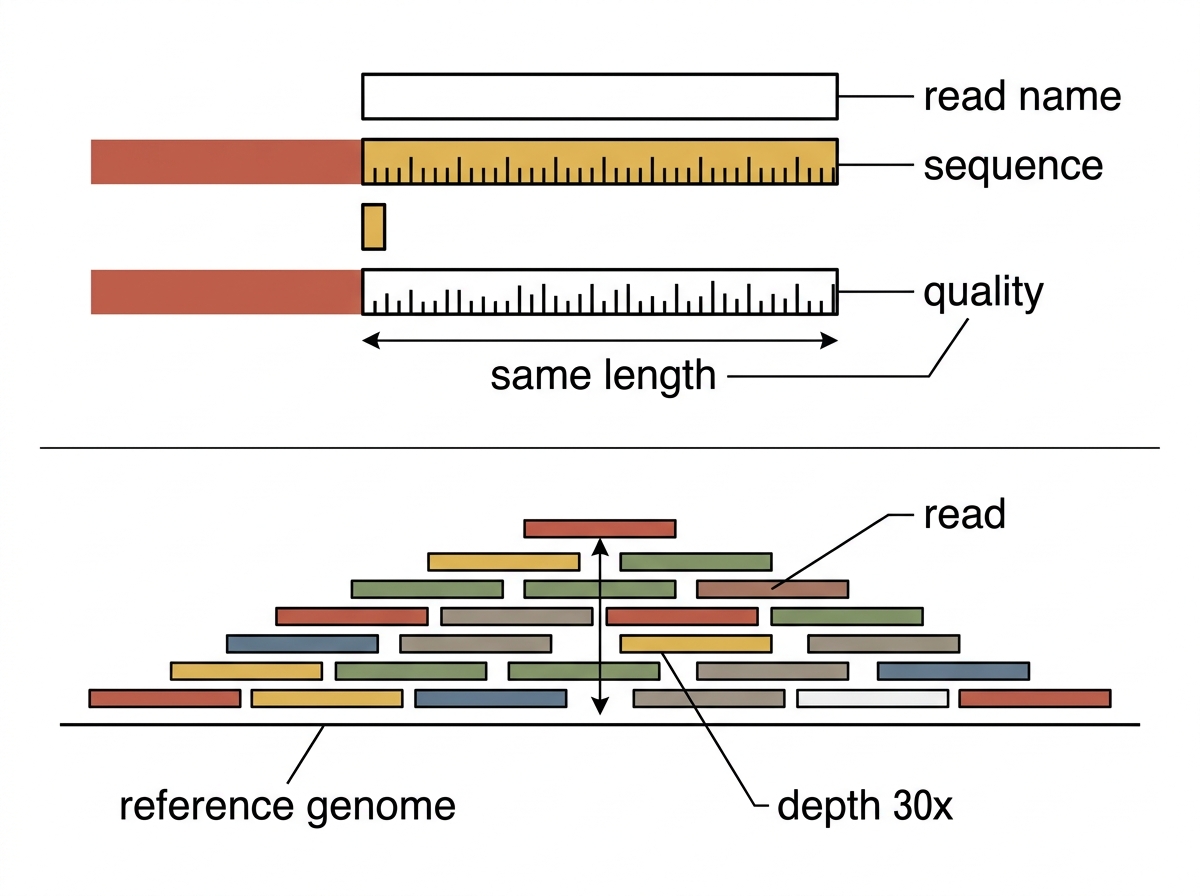
그리고 왜 이렇게 크냐면, 같은 자리를 여러 번 읽기 때문이다.
개의 게놈은 24억 글자다. 그것을 한 번씩만 읽으면 24억 글자면 된다. 그런데 한 번 읽어서는 그 글자가 진짜인지 장비가 틀린 것인지 알 수 없다.
그래서 겹쳐 읽는다. 같은 자리를 서른 번 읽으면 서른 개의 의견이 모인다. 스물아홉이 A라고 하고 하나가 G라고 하면, 그 하나는 오류다.
이것을 깊이라고 한다. 혈액은 삼십 겹쯤, 종양은 그보다 두세 배 깊게 읽었다. 종양은 정상 세포가 섞여 있어서 더 깊이 봐야 하기 때문이다.
24억 곱하기 서른, 거기에 종양 몫과 품질 줄을 더하면 200기가바이트가 된다.
폴은 그 파일들을 보며 잠시 멈췄다.
200기가바이트. 그건 단순한 데이터가 아니었다. 로지라는 한 생명체의 유전 정보 전체를 읽어낸 것이었다. 로지가 보호소에서 구조되기 전에 어떤 삶을 살았는지, 그 피부 흉터들이 어떤 경험에서 왔는지, 비만세포종이 어떻게 시작됐는지 — 그 모든 것의 흔적이 저 네 개 파일 어딘가에 담겨 있었다.
폴은 데이터 분석을 시작했다.
2 — 왜 두 개를 읽었는가
여기서 한 가지를 먼저 짚어야 한다. 왜 종양만 읽지 않고 혈액도 함께 읽었는가.
로지의 DNA를 참조 게놈과 견주면 다른 자리가 수백만 군데 나온다.
그중 거의 전부는 병과 아무 상관이 없다. 로지가 태어날 때부터 갖고 있던 것이다. 부모에게서 받았고, 온몸의 모든 세포에 똑같이 들어 있고, 로지를 로지로 만드는 차이들이다. 이런 것을 생식세포 변이라고 한다.
종양을 만든 변이는 그것과 다르다. 태어난 뒤에, 특정 세포 하나에서 생겼다. 그 세포가 갈라져 나온 자손들만 갖고 있다. 이것이 체세포 변이다.
종양 조직만 읽으면 그 수백만 개 안에 체세포 변이 몇천 개가 섞여 들어간다. 어느 것이 어느 것인지 알 수 없다.
그래서 혈액을 함께 읽는다.
혈액에는 종양이 없다. 그러니까 혈액에서 발견되는 차이는 전부 태어날 때부터 있던 것이다. 종양에는 있고 혈액에는 없는 것 — 그것만 남기면 된다.
뺄셈이다. 그리고 이 뺄셈이 이 장의 전부다.
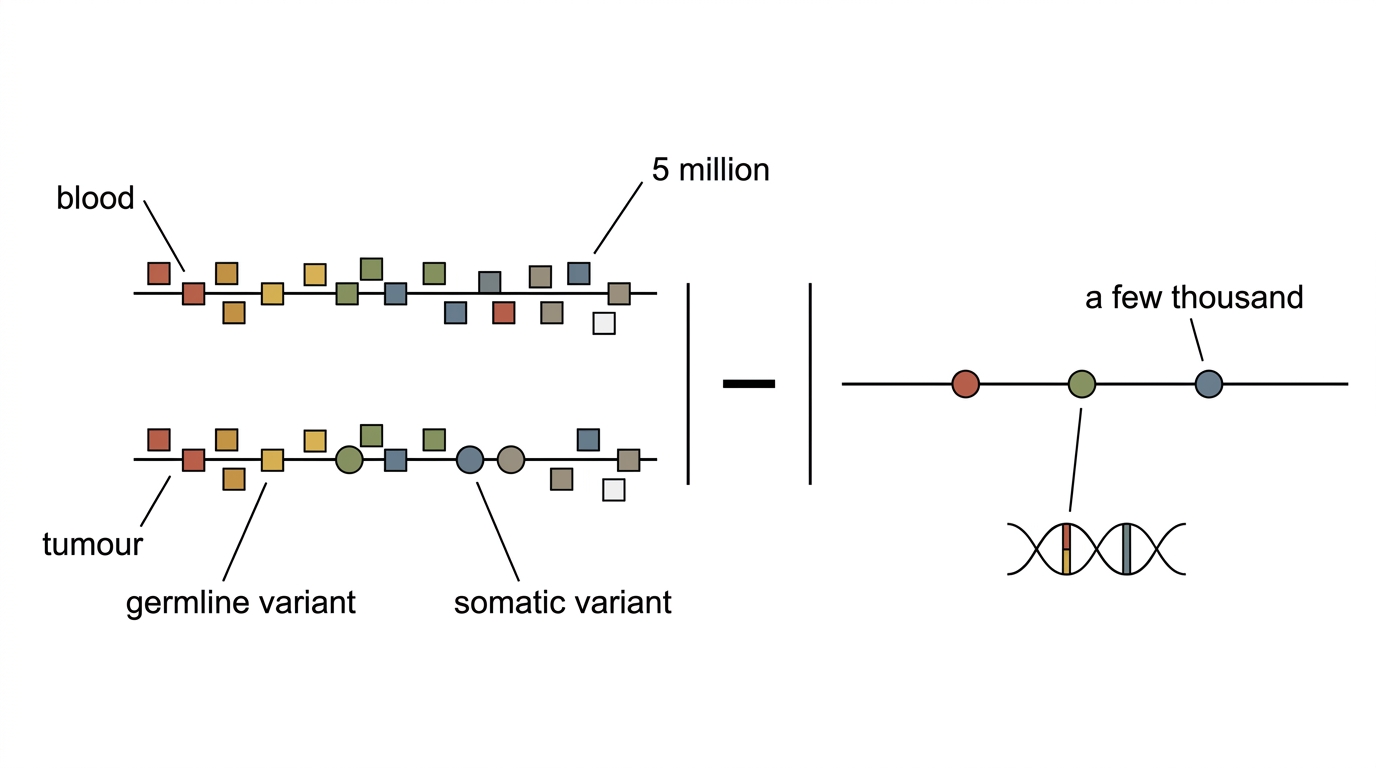
3천 달러 가운데 절반은 혈액을 읽는 데 썼다. 병이 없는 조직을 읽는 데 쓴 것이다.
그 절반이 없으면 나머지 절반이 아무 소용이 없다.
4 — 맞춰 놓기
첫 번째 단계는 정렬이었다.
두 게놈 데이터를 개의 표준 참조 게놈인 CanFam3.1에 맞춰 정렬했다. BWA-MEM이라는 소프트웨어를 사용했다. 수억 개의 짧은 DNA 조각들을 24억 개 염기쌍의 참조 게놈 위에 하나하나 맞추는 작업이었다.
퍼즐 맞추기와 비슷했다. 수억 개의 조각을 수억 칸의 판 위에 올리는 것. 다만 그 조각들이 어느 위치에 들어가는지는 이미 알고 있었다. 그래서 퍼즐보다는 교정(calibration)에 가까웠다.
조금 더 정확한 비유가 있다.
책 한 권을 잘게 찢어 종잇조각 수억 개를 만들었다고 하자. 조각 하나에는 글자 백오십 개가 적혀 있다. 이제 그 조각들이 원래 책의 어느 쪽 어느 줄에서 나왔는지 알아내야 한다.
다행히 그 책의 다른 판본이 한 권 있다. 판본이 참조 게놈이다. 조각을 들고 판본을 훑어 같은 문장이 나오는 자리를 찾는다.
대부분은 금방 찾는다. 백오십 글자쯤 되면 그 배열이 책 전체에서 딱 한 군데에만 나오기 때문이다.
문제가 되는 것은 같은 문장이 여러 쪽에 되풀이되는 대목이다. 게놈에는 그런 자리가 많다. 같은 짧은 배열이 수천 번 반복되는 구간이 게놈의 절반 가까이 된다.
거기에 떨어진 조각은 어디서 왔는지 알 수 없다. 그래서 정렬 프로그램은 자리 하나만 정해 주는 것이 아니라 그 자리를 얼마나 확신하는지도 함께 적어 준다. 확신이 낮은 조각은 나중에 변이를 찾을 때 무게를 낮추거나 버린다.
양쪽 끝을 읽어 둔 것이 여기서 쓸모가 생긴다. 한쪽 끝이 반복 구간에 떨어져 헤매도, 반대쪽 끝이 반복이 아닌 자리에 붙으면 짝을 따라 위치가 정해진다.
정렬이 끝난 뒤에는 Picard로 중복 리드를 제거했다. PCR 증폭 과정에서 생긴 가짜 중복들이었다. 이것들을 그냥 두면 나중에 변이 검출 정확도가 떨어진다.
중복 리드가 왜 문제인지는 앞의 깊이 이야기와 이어진다.
서른 겹으로 읽었다는 것은 서른 개의 독립적인 의견을 모았다는 뜻이다. 그래야 다수결이 의미가 있다.
그런데 시퀀싱 전에 DNA 양을 늘리려고 PCR로 복사를 한다. 복사본은 원본과 글자가 똑같다. 원본에 오류가 있었다면 복사본에도 그대로 있다.
그 복사본들이 각각 하나의 리드로 세어지면, 의견 하나가 서른 번 말한 것을 서른 사람이 말한 것으로 오해하게 된다. 없는 확신이 생긴다.
그래서 시작 위치와 끝 위치가 완전히 같은 리드들을 찾아 하나만 남긴다. 같은 조각에서 나왔을 가능성이 높기 때문이다.
그리고 GATK Mutect2를 실행했다.
이것이 핵심이었다. 혈액 게놈(정상)과 종양 게놈을 나란히 놓고, 종양에서만 나타나는 변이를 찾아내는 것. 소매틱 배리언트 콜링(somatic variant calling)이라고 불리는 작업이었다.
5 — Mutect2가 하는 일
Mutect2가 실제로 하는 일은 자리마다 이런 질문을 던지는 것이다.
이 자리에서 종양 리드 여든 개 중 예순여덟 개가 T라고 하고, 혈액 리드 마흔 개는 전부 A라고 한다. 이것을 우연이라고 볼 수 있는가.
볼 수 없다면 체세포 변이 후보로 적는다.
판단이 어려운 자리가 늘 있다. 종양 리드 여든 개 중 셋만 T라면? 그것은 종양 안의 작은 무리가 가진 변이일 수도 있고, 그냥 장비 오류 세 번일 수도 있다.
그리고 종양 조직에는 정상 세포가 섞여 있다. 혈관, 면역세포, 결합조직. 그래서 종양 세포 전부가 가진 변이라도 리드 비율은 100퍼센트가 되지 않는다.
이 두 가지 때문에 문턱을 어디에 둘지가 문제가 된다. 낮게 두면 오류가 딸려 들어오고, 높게 두면 진짜 변이를 놓친다.
Mutect2는 문턱을 하나로 정하지 않고 자리마다 확률을 계산한다. 그 자리의 깊이, 품질 점수, 정렬 확신, 주변 배열까지 넣어서.
컴퓨터가 몇 시간 돌아간 것은 그 계산을 24억 자리에 대해 했기 때문이다.
컴퓨터가 몇 시간을 돌아갔다.
7 — 4,847개에서 하나로
결과 파일이 생성됐다.
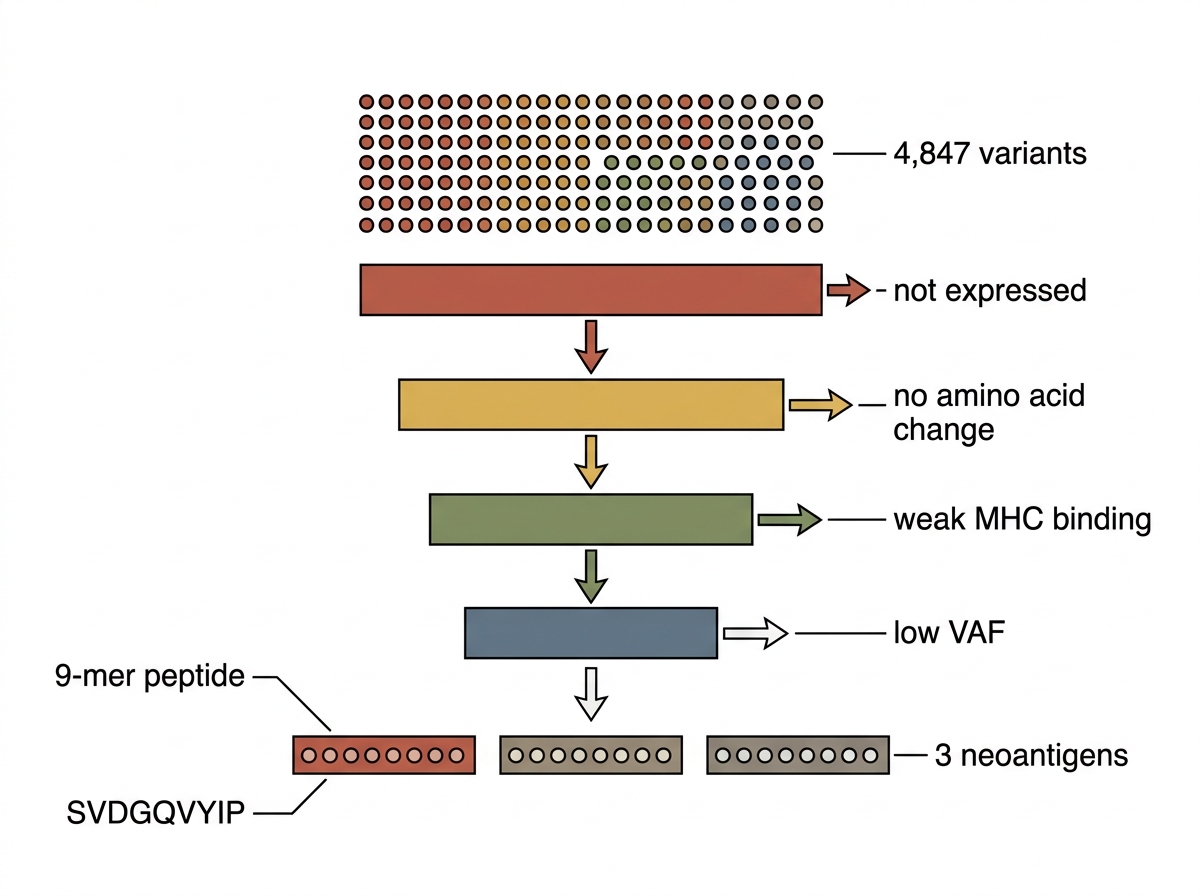
4,847개의 후보 변이가 있었다. 폴이 필터링을 시작했다. 낮은 신뢰도 변이를 제거하고, 단백질에 영향을 미치지 않는 변이를 걷어냈다. VEP(Variant Effect Predictor)로 각 변이의 기능적 영향을 주석 달았다.
4,847개라는 숫자를 보고 기뻐할 일은 아니다.
그 안에는 진짜 체세포 변이도 있고, 걸러지지 않은 오류도 있고, 정렬이 헷갈린 자리도 있다. 목록은 답이 아니라 후보다.
거르는 순서는 대체로 이렇다.
먼저 신뢰도. 깊이가 얕은 자리, 한쪽 방향으로 읽은 리드에서만 나온 자리, 반복 구간에 걸친 자리를 뺀다.
그다음이 VEP가 하는 일이다.
VEP는 게놈 좌표 하나를 받아서 그 자리가 어느 유전자의 어디이며, 그 변화가 단백질을 어떻게 바꾸는가를 알려 준다.
세 글자가 한 아미노산을 지정하므로, 글자 하나가 바뀌어도 아미노산이 그대로일 때가 있다. 동의 변이라고 한다. 단백질이 안 바뀌면 면역계에 새로 보일 것도 없다. 뺀다.
아미노산이 바뀌는 것 — 과녁 변이 — 만 남긴다. 여기에 단백질을 중간에 끊어 버리는 변이와 틀을 밀어 버리는 변이도 남긴다. 이런 것들은 아예 새로운 서열을 만들어 내므로 오히려 좋은 표적이 된다.
그리고 유전자 사이의 넓은 빈 구간에 떨어진 변이를 뺀다. 개의 게놈에서 단백질을 만드는 부분은 전체의 2퍼센트가 채 안 된다. 4,847개 대부분이 여기서 사라진다.
마지막으로 이미 알려진 암 유전자 목록과 견준다. 목록에 있는 유전자에 떨어진 변이가 남는다.
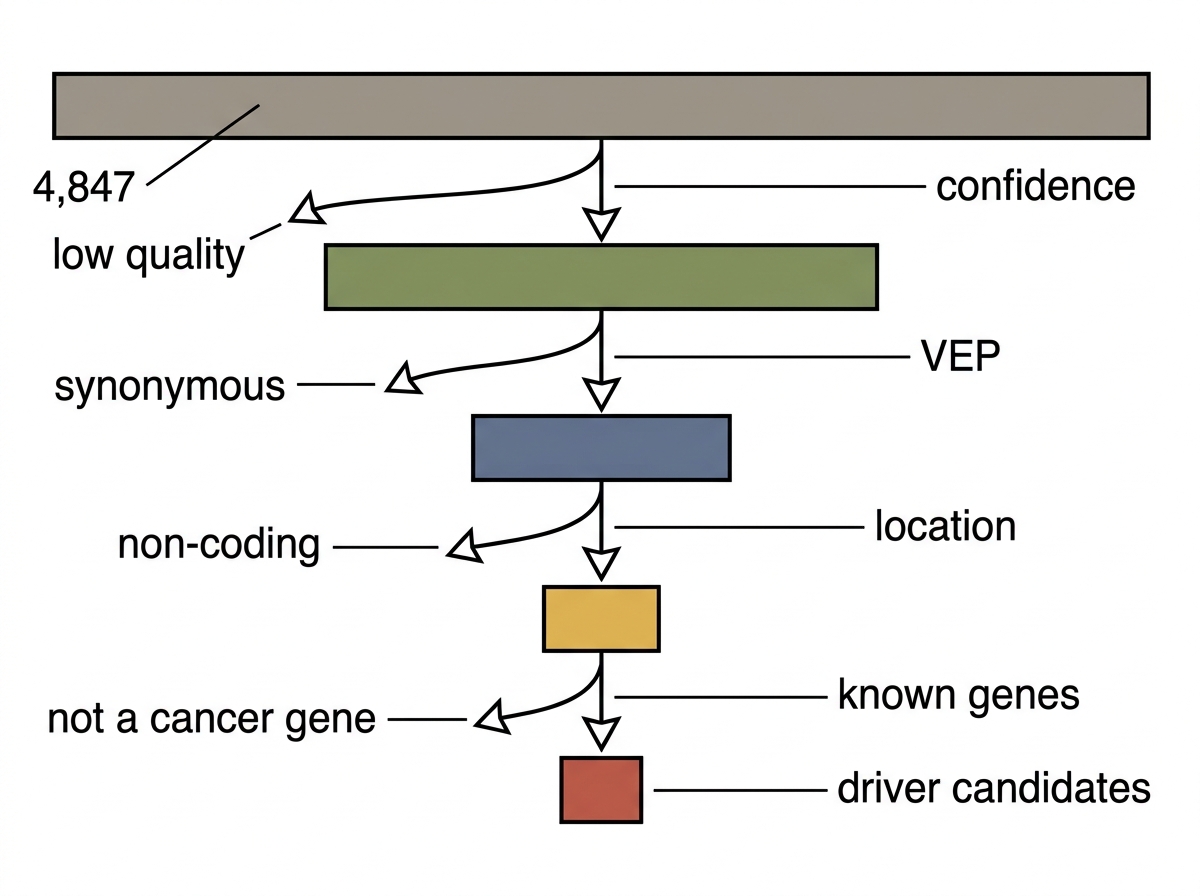
목록이 줄어들었다.
그리고 한 변이가 눈에 들어왔다.
KIT p.Asp816Val. VAF 0.847.
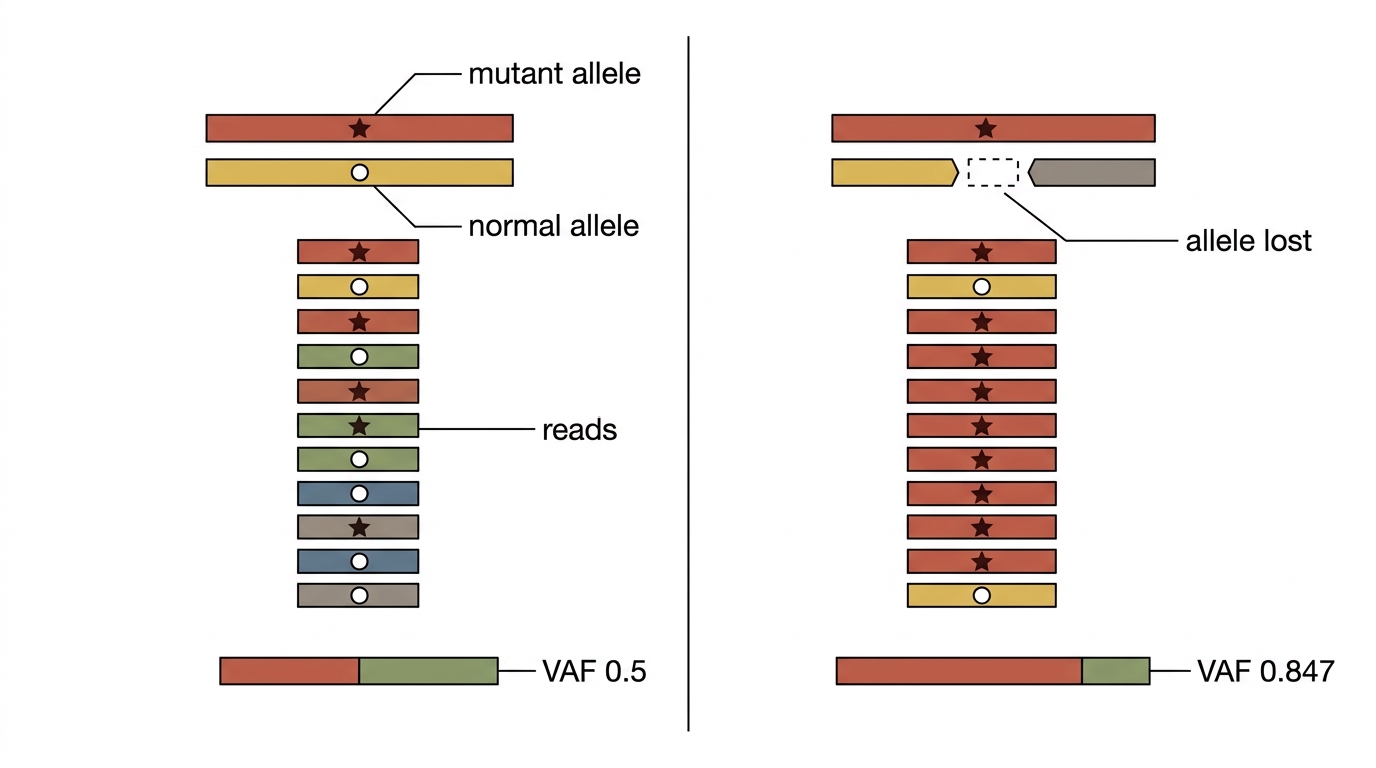
KIT 유전자의 816번 아미노산 위치에서 아스파르트산이 발린으로 바뀐 것이었다. 그 변이를 가진 DNA 리드의 비율이 84.7퍼센트였다. 이형접합이라면 절반에 머물렀어야 할 숫자였다. 종양이 변이를 얻은 것만이 아니라 멀쩡한 쪽 사본을 잃었다는 뜻이었다. 드라이버 변이였다. 종양을 이끌어온 핵심 돌연변이.
8 — 84.7퍼센트가 말해 준 것
VAF라는 말부터 정리해 두자. 그 자리를 읽은 리드 가운데 변이를 가진 리드의 비율이다. 리드의 비율이지 세포의 비율이 아니다.
그 둘은 다르다.
염색체는 두 벌이다. 아버지에게서 하나, 어머니에게서 하나. 변이는 대개 그중 한 벌에만 생긴다.
그러니까 어떤 세포가 이 변이를 갖고 있다면, 그 세포에서 나온 리드의 절반은 변이를 갖고 절반은 갖지 않는다. 성한 사본이 아직 하나 남아 있기 때문이다.
종양 세포 100퍼센트가 이 변이를 가졌다 해도 VAF는 0.5다.
그런데 화면의 숫자는 0.847이었다.
0.5보다 한참 높다. 세포를 아무리 많이 세어도 이 숫자는 나오지 않는다. 다른 일이 있었다는 뜻이다.
성한 쪽 사본을 잃은 것이다.
종양이 자라는 동안 어느 시점에, 멀쩡한 KIT 유전자를 담고 있던 염색체 조각이 통째로 떨어져 나갔다. 이형접합성 소실이라고 부른다. 남은 것은 고장 난 사본뿐이었다.
이것이 왜 중요하냐면, 우연히 생긴 변이가 아니라는 뜻이기 때문이다. 종양은 이 변이를 얻었고, 그다음에 그것을 상쇄할 수 있는 성한 사본을 버렸다. 두 번의 사건이 같은 방향을 가리켰다.
폴은 그 숫자를 오래 바라봤다.
KIT p.Asp816Val. VAF 0.847.
이것이 로지의 종양을 만든 것이었다. 스위치 하나가 고장 난 것. 그 스위치가 고장 나지 않았다면 로지는 지금도 매일 아침 공원에서 줄을 당기며 뛰어다니고 있었을 것이었다.
제7장 — 보이지 않는 것을 보다
1 — 스위치
마틴이 결과를 보고 말했다.
"KIT D816V면 예상했던 대로네요. 개 비만세포종에서 제일 흔한 드라이버입니다. 문제는 이 변이가 이마티닙 내성과 관련된다는 거예요."
그 말을 이해하려면 KIT가 무엇인지부터 알아야 한다.
키나아제는 스위치다.
하는 일은 하나뿐이다. 다른 단백질에 인산기를 하나 붙인다. 인산기가 붙으면 그 단백질의 모양이 바뀌고, 모양이 바뀌면 다음 단백질이 달라붙는다. 세포 안에서 소식이 전해지는 방식이 그것이다.
KIT는 세포막에 박혀 있다. 바깥쪽 끝이 밖으로 나와 있고 안쪽 끝이 세포질에 잠겨 있다. 바깥쪽에 정해진 신호 물질이 와서 붙으면 안쪽이 켜지고, 켜진 KIT가 인산기를 붙이기 시작한다.
그 신호가 뜻하는 바는 자라라, 나뉘어라, 죽지 마라이다. 비만세포가 자라야 할 때 켜지고 그러지 않을 때 꺼진다.
꺼질 수 있어야 스위치다.
고장 난 스위치는 켜져 있는 스위치가 아니라 끌 수 없는 스위치다. 신호가 없는데도 켜져 있고, 자라라는 명령을 쉬지 않고 내보낸다.
그렇게 자란 세포 덩어리가 로지의 뒷다리 위에 있는 것이었다.
이마티닙 같은 약이 하는 일은 그 스위치를 다시 꺼진 자리에 붙들어 놓는 것이다. 다만 그 약은 꺼져 있는 모양의 단백질에만 달라붙을 수 있다.
그러니까 물음은 이렇게 된다. D816V 단백질은 아직 꺼진 모양이 될 수 있는가.
"그래서 표준 KIT 저해제가 효과가 없을 수 있다는 거죠?"
"1세대 KIT 저해제들은요. 그래서 제가 다음 단계로 AlphaFold로 구조를 봐보는 게 어떻겠냐고 하는 겁니다. 변이 전후 구조 차이가 신생항원 설계에 도움이 될 수 있거든요."
폴은 AlphaFold2를 실행했다. DeepMind가 개발한 이 AI 시스템은 아미노산 서열만 주면 단백질의 3차원 구조를 예측해준다. 수십 년 걸리던 X선 결정학 실험을 컴퓨터로 수십 분에 대체하는 것이었다.
AlphaFold가 하는 일과 하지 못하는 일을 나눠 두는 편이 좋다.
하는 일. 아미노산이 늘어선 순서만 보고 그 사슬이 공간에서 어떤 모양으로 접힐지를 맞힌다. 실험으로 풀린 구조 수십만 개를 학습해서, 어떤 배열이 어떤 모양을 만드는지의 규칙을 익혔다.
결과에는 자리마다 확신 점수가 붙어 나온다. 촘촘히 접힌 속은 대개 점수가 높고, 흐물거리는 고리는 낮다. 점수가 낮은 자리를 그대로 믿고 논의를 쌓으면 안 된다.
하지 못하는 일. 아미노산 하나가 바뀌었을 때의 변화를 정확히 맞히지 못한다.
학습한 것이 서열 하나 → 모양 하나이기 때문이다. 글자 하나만 바꿔 넣으면 대개 거의 같은 모양을 내놓는다. 실제로는 그 하나 때문에 단백질이 딴판으로 행동하는 경우가 얼마든지 있는데도 그렇다.
그리고 내놓는 것은 사진 한 장이다. 단백질은 사진이 아니다. 쉬지 않고 흔들리고, 여러 모양 사이를 오간다.
폴은 그것을 모르고 시작했다. 뒤에 가서 알게 된다.
야생형 KIT와 D816V 변이형 KIT를 각각 입력했다.
두 구조가 화면에 나타났다.
4 — 0.41 옹스트롬
처음엔 비슷해 보였다.
RMSD 0.41 옹스트롬. 전체 구조에서는 거의 차이가 없었다. 그러나 폴이 활성화 루프 부분을 클로즈업했을 때, 차이가 드러났다.
RMSD는 두 구조를 겹쳐 놓고 잰 평균 어긋남이다.
먼저 한쪽을 돌리고 옮겨서 다른 쪽에 가장 잘 포개지게 만든다. 그다음 원자마다 두 구조 사이의 거리를 재고, 제곱해서 평균 내고, 다시 제곱근을 씌운다. 제곱을 하는 것은 크게 어긋난 곳에 더 큰 벌점을 주기 위해서다.
옹스트롬은 1억분의 1센티미터다. 원자 하나의 지름이 대략 그쯤 된다.
그러니까 0.41 옹스트롬은 원자 반 개만큼도 어긋나지 않았다는 뜻이다. 같은 단백질을 두 번 예측해도 그 정도 차이는 난다.
0.41은 "차이가 없다"는 말이 아니라 "이 방법으로는 안 보인다"는 말이었다.
전체를 평균 내면 그렇게 된다. 삼백 개 잔기 가운데 열 개가 크게 움직여도, 나머지 이백구십 개가 그대로면 평균은 거의 0이다.
그래서 전체 RMSD는 대개 첫 번째 확인용으로만 쓴다. 접힘이 통째로 무너지지는 않았다는 것. 그것을 확인한 다음에는 부분을 봐야 한다.
폴이 화면을 돌려가며 활성화 루프만 따로 겹쳐 본 것은 그래서였다.
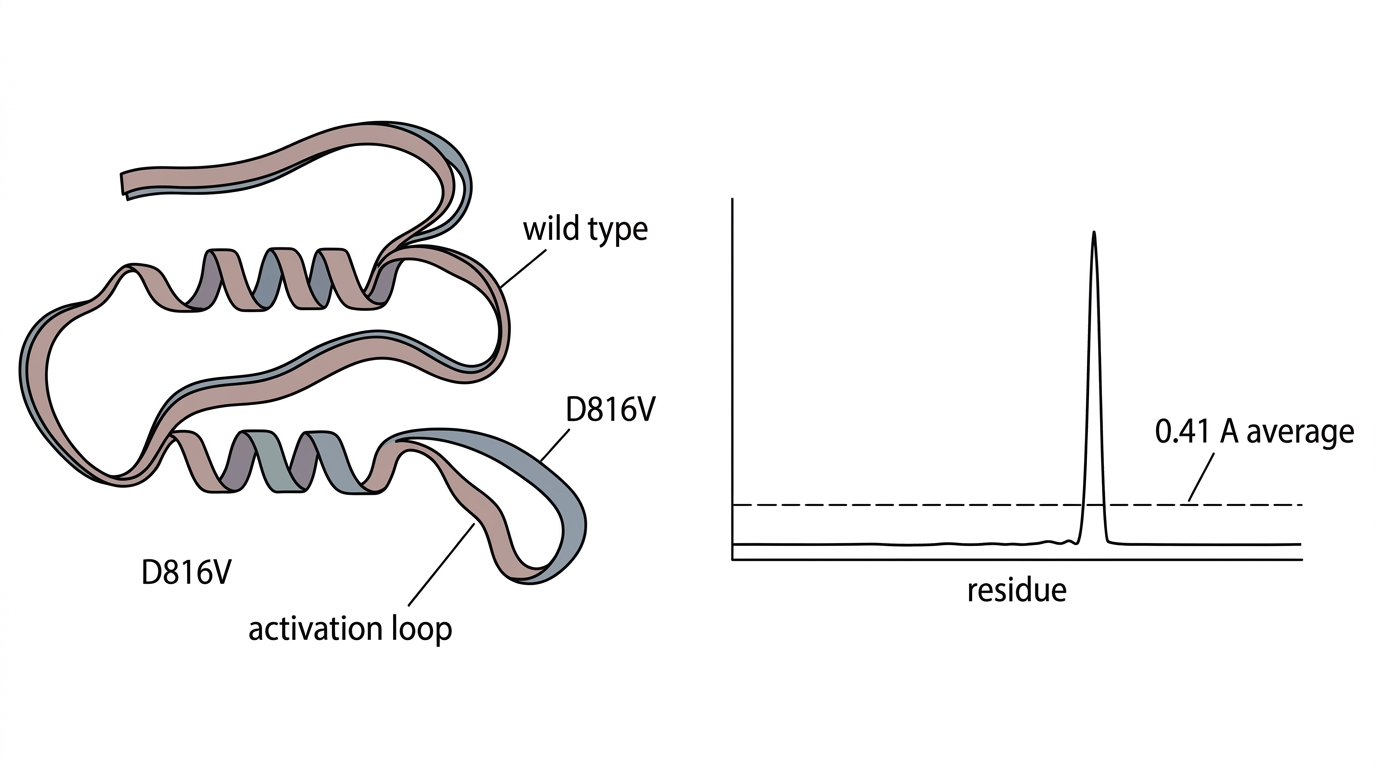
DFG 모티프.
키나아제 활성화 루프 앞에 있는 Asp-Phe-Gly 세 아미노산의 서열이었다. 이 세 글자가 스위치의 걸쇠다. 아스파르트산이 안쪽을 향하면 DFG-in — 활성 상태다. 바깥으로 돌아 나가면 DFG-out — 비활성 상태다. 야생형에서는 이 모티프가 142.3도로 꺾여 있었다. 신호가 오면 안으로 들어가 켜지고, 신호가 없으면 바깥으로 나가 꺼지는 정상적인 스위치.
변이형에서는 그 각도가 67.8도였다. DFG-in에 들어앉은 채였다. 스위치가 항상 켜진 위치에 고정된 것이었다.
활성화 루프는 스위치의 걸쇠다.
길이 스무 개 남짓한 고리인데, 이것이 접히는 자리에 따라 ATP가 들어올 입구가 열리기도 하고 막히기도 한다. 열리면 켜지고 막히면 꺼진다.
DFG는 그 고리가 시작되는 자리에 있는 세 글자다. 아스파르트산, 페닐알라닌, 글리신.
아스파르트산이 안쪽을 향하면 마그네슘 이온을 붙잡고 ATP를 제자리에 앉힌다. 일할 준비가 된 자세다.
바깥으로 돌아 나가면 그 자리를 페닐알라닌의 커다란 고리가 대신 채워 버린다. ATP가 들어올 데가 없다. 꺼진 자세다.
그리고 이마티닙이 파고드는 틈은 꺼진 자세에서만 생긴다. 페닐알라닌이 옮겨 가면서 옆에 없던 주머니가 열리는데, 이마티닙은 그 주머니 모양에 맞춰 만들어진 약이다.
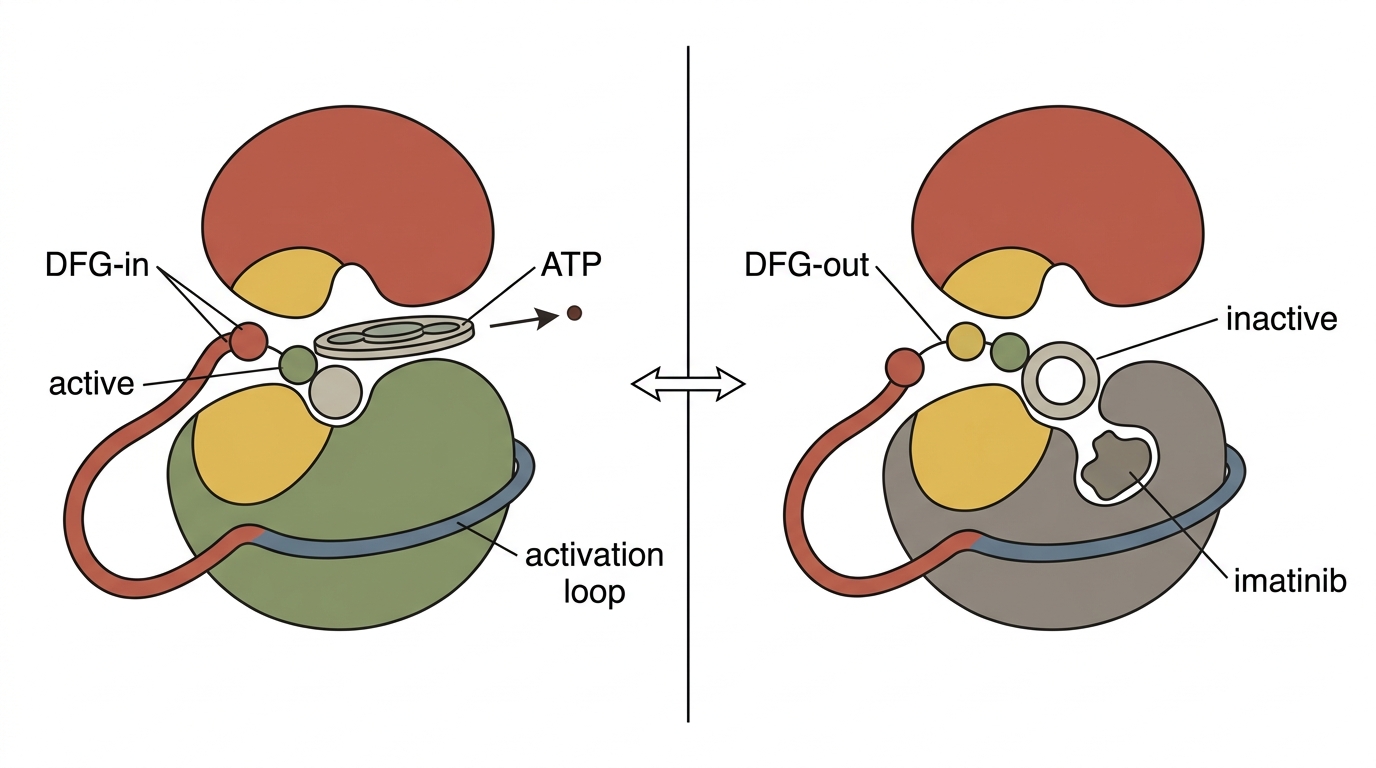
아스파르트산(Asp, D) 하나가 발린(Val, V)으로 바뀐 것. 그 조그만 변화가 단백질의 전체 행동 방식을 바꿔놨다. 아스파르트산은 음전하를 띠고 수소결합을 형성할 수 있는 아미노산이었다. 발린은 비극성이고 그런 결합을 형성하지 못했다. 그 수소결합이 사라지면서 활성화 루프가 DFG-out 상태로 고정된 것이었다.
한 글자가 그렇게 큰 이유를 조금 더 적으면 이렇다.
아스파르트산은 짧고, 끝에 음전하를 띤 손이 달려 있다. 그 손으로 이웃 잔기를 붙잡아 활성화 루프를 접힌 자리에 묶어 둔다. 스위치가 꺼진 자세로 돌아갈 수 있는 것은 그 손이 있어서다.
발린은 손이 없다. 기름지고, 가지가 갈라져 뭉툭하다. 붙잡지 못할 뿐 아니라 부피 때문에 원래 자리에 잘 들어가지도 않는다.
묶어 두던 끈이 끊어지자 루프가 풀린 자세로 눌러앉았다.
그런데 여기서 폴은 막혔다. AlphaFold가 내놓은 것은 사진 두 장이었다. 야생형 한 장, 변이형 한 장. 각도가 다르다는 것까지는 보였지만, 그 자세가 계속 유지되는지는 사진으로 알 수 없었다.
변이형이 대부분의 시간을 켜진 자세로 보내는 것인지, 아니면 이따금 꺼진 자세로 돌아가는 것인지. 이마티닙이 들을지 안 들을지는 거기에 달려 있었다.
사진으로는 답이 나오지 않는 물음이었다. 영상이 필요했다.
폴은 OpenMM으로 분자 동역학 시뮬레이션을 돌렸다. 37도씨, 생리적 조건에서 100나노초 동안. 결과를 보니 D816V 변이 단백질이 생리 조건에서 DFG-in 상태를 94.3퍼센트의 시간 동안 유지했다. 그냥 항상 켜져 있는 것이었다.
6 — 사진에서 영상으로
분자 동역학은 단순한 생각에서 나온다.
원자마다 위치가 있고, 이웃 원자들이 밀거나 당기는 힘이 있다. 힘을 알면 다음 순간의 위치를 계산할 수 있다. 고등학교에서 배우는 뉴턴의 운동 법칙 그대로다.
그 계산을 모든 원자에 대해 한 번 하면 아주 짧은 시간이 흐른다. 그리고 다시 한다. 계속 반복하면 단백질이 움직이는 영상이 만들어진다.
한 걸음의 길이는 2펨토초다. 1펨토초는 1초의 천조분의 1이다. 그렇게 짧게 끊는 것은 원자 중에 제일 가벼운 수소가 아주 빠르게 떨리기 때문이다. 걸음이 길면 그 떨림을 놓치고 계산이 무너진다.
100나노초를 계산하려면 그 걸음을 5천만 번 밟아야 한다.
그것도 진공에서가 아니다. 단백질 둘레를 물 분자로 채우고, 체온과 같은 온도와 몸속과 같은 염 농도를 맞춘 다음에 돌린다. 계산할 원자가 수만 개가 된다.
폴의 컴퓨터가 그 일을 하는 동안, 로지는 소파에서 자고 있었다.
그리고 94.3퍼센트라는 숫자가 나왔다.
5천만 걸음 가운데 열아홉에 열여덟은 켜진 자세였다. 꺼진 자세로 돌아가는 일이 거의 없었다.
사진으로는 각도가 다르다는 것까지였다. 영상은 그 자세가 머문다는 것을 보여 줬다.

그 상태에서 표준 KIT 저해제인 이마티닙이 결합하기 어려운 것은 당연했다. 이마티닙은 꺼져 있는 단백질에 붙는 약이다. DFG-out 상태의 틈으로 파고들어 스위치를 그 자리에 붙들어 놓는 방식으로 작동한다. 그런데 D816V 단백질은 그 틈을 거의 열지 않았다. 열쇠가 맞지 않은 것이 아니라, 열쇠구멍이 나타나지 않았다.
마틴이 말했다. "그러니까 일반 약은 안 듣는 거고, 면역 공격이 더 나은 선택이 될 수 있는 거예요."
폴이 물었다. "그런데 이 구조가 백신 설계에는 어떻게 쓰이는 거예요?"
마틴이 잠시 뜸을 들였다.
"솔직히 말하면, 직접적으로는 별로 안 쓰입니다."
면역계가 알아보는 것은 접힌 단백질이 아니다. 프로테아솜이 잘라 낸 아홉 글자짜리 조각이다. 조각이 되고 나면 원래 어떤 모양이었는지는 남지 않는다.
"그럼 왜 보자고 하신 거예요?"
"두 가지요. 하나는 이 변이가 진짜 드라이버인지 확인하려고요. 종양에서 발견된 변이라고 다 원인은 아니거든요. 구조가 이렇게 망가져 있으면 원인 쪽이 확실합니다."
"다른 하나는요?"
"약으로 가는 길이 닫혔다는 걸 확인한 겁니다."
그것이 이 장에서 실제로 얻은 것이었다. 새로운 표적이 아니라, 남은 길이 하나라는 확인.
제8장 — 두 번째 교수와의 만남
1 — 세 번째 이메일
팔 토다르손 교수는 아이슬란드 사람이었다.
UNSW RNA Institute 소장이었고, 나노의학이 전공이었다. 키가 크고 머리가 희끗했으며, 말을 천천히 했다. 마틴을 통해 소개받아서 첫 만남은 화상통화로 이루어졌다.
"mRNA 백신을 직접 만들어보려는 거군요."
"네."
"돈이 얼마 있으십니까?"
"그게 제일 큰 문제인가요?"
팔이 잠시 생각하더니 말했다. "아니요. 제일 큰 문제는 LNP입니다. 지질 나노입자. mRNA를 세포 안으로 전달하는 그것이 가장 까다로운 부분입니다."
팔은 이렇게 설명했다. mRNA는 RNA 분해 효소에 매우 취약하다. 주사를 놓으면 혈중에서 순식간에 분해된다. 그걸 세포 안까지 무사히 전달하려면 지질 나노입자라는 캡슐이 필요하다. 지질 분자들이 자발적으로 조립해서 만드는 아주 작은 구체. 크기가 100나노미터 정도. 그 안에 mRNA를 넣어서 세포막과 융합시킨다.
그런데 이 지질 나노입자를 제대로 만드는 게 어렵다는 것이었다. 크기가 너무 크거나, 성분 비율이 맞지 않거나, 봉입 효율이 낮거나. 이 중 하나만 틀려도 백신이 작동하지 않는다.
"이전에 LNP를 만들어보신 적 있습니까?"
"없습니다."
"저도 개 면역 시스템에 맞춤화된 LNP를 만들어본 적은 없어요." 팔이 말했다. "하지만 한번 해봅시다."
2 — 세 부분
백신 설계는 세 부분으로 나뉘었다.
첫째는 신생항원 선별이었다. 폴이 GATK로 찾은 변이들 중에서 실제로 면역 반응을 일으킬 수 있는 것들을 골라내야 했다. pVAC-Seq라는 파이프라인을 썼다. 각 변이에서 생기는 펩타이드 조각이 MHC 분자와 얼마나 잘 결합하는지를 NetMHCpan 알고리즘으로 예측했다.
신생항원을 고른다는 것이 무슨 일인지 풀면 이렇다.
종양 세포는 자기가 만든 단백질을 잘라 표면에 내건다. 정상 세포도 똑같이 한다. 면역계가 종양을 알아보려면, 종양이 내거는 조각 가운데 정상 세포는 절대 내걸지 않는 것이 있어야 한다.
변이가 그것을 만든다. 아미노산 하나가 바뀌면 그 자리를 지나는 조각들의 서열이 달라진다. 그런 조각을 신생항원이라고 한다.
다만 변이가 있다고 신생항원이 되는 것은 아니다. 세 관문을 지나야 한다.
첫째, 그 유전자가 실제로 발현되어야 한다. 만들지 않는 단백질은 잘릴 것도 없다.
둘째, 프로테아솜이 하필 그 변이를 포함하도록 잘라 줘야 한다. 변이 옆을 잘라 버리면 변이는 조각에 안 들어간다.
셋째, 잘린 조각이 MHC 홈에 들어맞아야 한다. 여기가 예측이 개입하는 자리다.
그래서 프로그램이 하는 일은 이렇다. 변이 하나마다 그 자리를 지나는 아홉 글자짜리 조각을 가능한 모든 위치에서 잘라 낸다. 변이가 첫 글자인 것, 둘째 글자인 것, 아홉째 글자인 것 — 아홉 가지다. 그 아홉 개를 전부 MHC에 넣어 보고 점수를 매긴다.
아홉인 것은 MHC 클래스 I의 홈이 양 끝이 막힌 구멍이라서다. 열려 있으면 아무 길이나 들어가겠지만, 막혀 있으니 길이가 맞아야 한다. 여덟에서 열하나까지 들어가고 아홉이 가장 잘 맞는다.
로지의 DLA 유형을 넣고 실행했다. DLA는 Dog Leukocyte Antigen, 개의 MHC 유전자였다.
결과가 나왔다.
KIT D816V에서 온 펩타이드 SVDGQVYIP가 IC50 87나노몰이었다. 500나노몰 이하면 강한 결합이라는 기준에서, 이건 매우 강했다. 우선순위 1번이었다.
3 — 숫자가 작을수록 좋은 숫자
IC50이 무엇인지 짚고 가야 한다. 여기서 처음으로 작을수록 좋은 숫자가 나오기 때문이다.
이 숫자는 농도다. 그 펩타이드를 얼마나 진하게 넣어야 MHC 자리의 절반을 차지하느냐.
잘 붙는 펩타이드는 조금만 넣어도 자리를 차지한다. 그러니까 작은 숫자가 강한 결합이다.
나노몰이라는 단위는 10억분의 1몰이다. 감을 잡기 어려운 크기다. 그래서 이렇게 견주는 편이 낫다 — 87나노몰과 500나노몰의 차이는, 각설탕 한 개를 욕조에 풀 것이냐 수영장에 풀 것이냐의 차이에 가깝다. 욕조 쪽이 더 진하다.
500나노몰이라는 선은 실험으로 확인된 결합체들을 모아 놓고 그은 관행적인 선이다. 그 아래면 대체로 실제로 붙는다.
87나노몰은 그 선의 6분의 1이다.
다만 이 숫자에는 두 가지가 붙어 다녀야 한다.
하나. 예측값이지 측정값이 아니다. 아무도 이 펩타이드를 로지의 DLA와 섞어 보지 않았다. 프로그램이 학습한 규칙에서 나온 숫자다.
둘. MHC 종류마다 붙는 성질이 다르다. 어떤 것은 대부분의 펩타이드를 꽤 잘 붙잡고, 어떤 것은 까다롭다. 그래서 요즘은 절대 농도 대신 같은 MHC에 대해 상위 몇 퍼센트인가를 보는 쪽을 더 믿는다.
폴은 그때 그것을 몰랐다. 10장에서 라첼이 짚어 줄 것이었다.
TP53 R248W에서 온 RAHSSHLKSIP가 143나노몰이었다. 우선순위 2번.
RAS G12D에서 온 VVVGAGGVGK가 298나노몰이었다. 우선순위 3번.
세 가지 신생항원이 확정됐다.
나머지 두 개도 낯선 이름이 아니었다.
TP53은 세포가 망가졌을 때 분열을 멈추게 하는 유전자다. 사람 암의 절반쯤에서 고장 나 있다. 248번 자리는 그중에서도 유난히 자주 망가지는 곳이다.
RAS의 12번 자리도 마찬가지다. 이 두 자리는 암 연구에서 수십 년째 같은 얼굴로 나타난다.
폴의 목록에 그 둘이 올라온 것은 로지의 종양이 특별해서가 아니었다. 암이 망가지는 방식이 대체로 정해져 있기 때문이었다.
그리고 왜 셋을 넣었는가.
하나만 넣어도 되는 일이라면 하나만 넣는 편이 간단하다. 그런데 셋을 넣은 데는 이유가 둘 있었다.
첫째, 예측이 빗나갈 수 있다. 87나노몰은 계산된 숫자이고, 개에서는 그 계산이 사람에서만큼 믿을 만하지 않다.
둘째, 종양이 도망갈 수 있다. 표적이 하나면 그 하나를 내걸지 않는 세포만 살아남아 다시 자란다.
셋이면 셋 다 버려야 도망갈 수 있다. 그만큼 어려워진다.
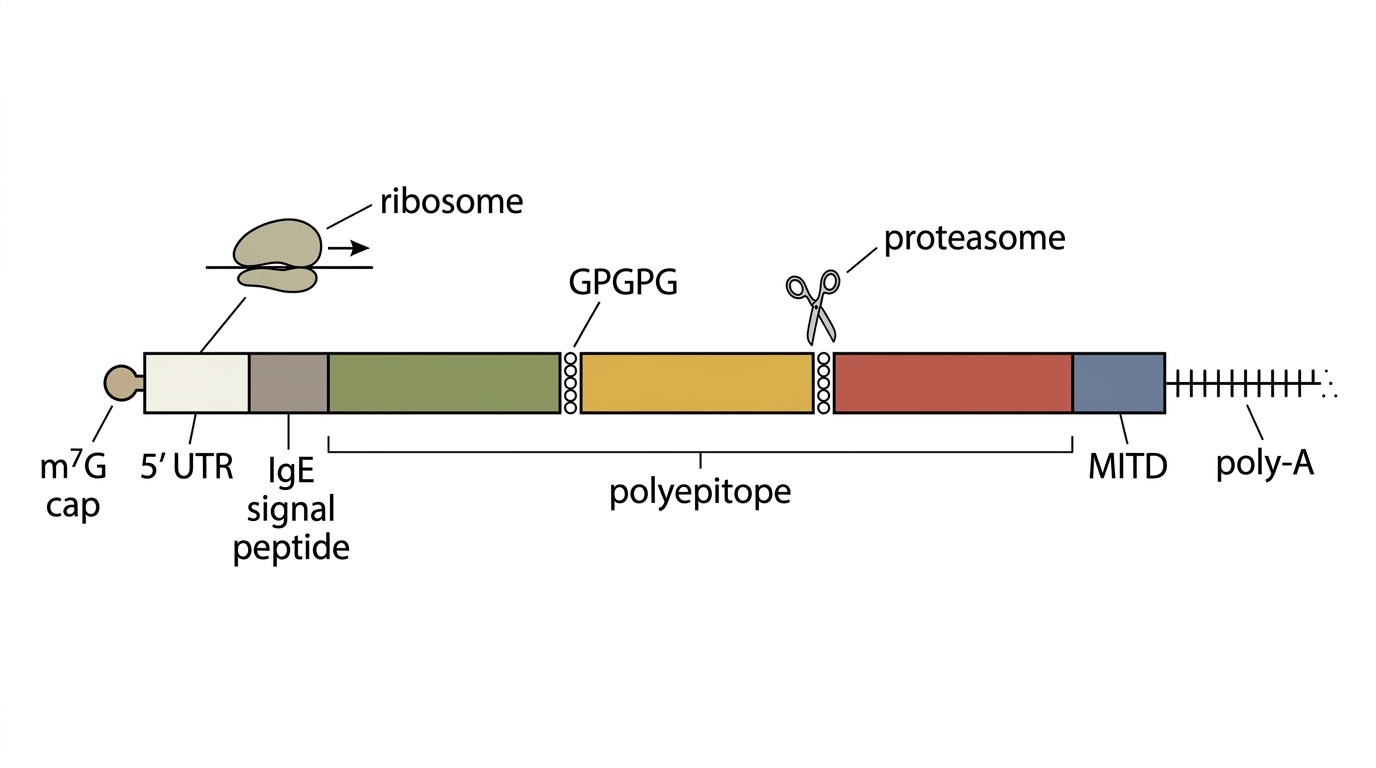
둘째는 mRNA 서열 설계였다. 세 신생항원을 하나의 폴리에피토프로 연결했다. GPGPG 링커로 이어 붙였다. 앞에는 m7G 캡과 IgE 신호 펩타이드를 달고, 뒤에는 MITD와 polyA 꼬리를 붙였다. 개의 코돈 사용 빈도에 맞게 최적화했다. CAI가 0.61에서 0.89로 올라갔다.
4 — 한 줄로 잇기
그 한 문장 안에 부품이 일곱 개 들어 있다. 하나씩 풀면 이렇다.
m7G 캡. 맨 앞의 마개. 세포가 인정한 정상 mRNA라는 표시이자, 번역을 시작하는 손잡이다. 없으면 세포가 침입자로 보고 공격한다.
5' 비번역 부위. 마개와 시작 지점 사이의 짧은 구간. 리보솜이 올라타 미끄러져 갈 활주로다. 이 구간의 배열에 따라 같은 단백질이 몇 배씩 더 만들어지기도 한다.
IgE 신호 펩타이드. 주소. 이것이 앞에 붙어 있으면 사슬이 소포체 안쪽에서 만들어진다.
세 개의 신생항원. 화물.
GPGPG 링커. 조각과 조각 사이를 잇는 이음매다. 이것이 왜 하필 글리신과 프롤린인지에 이유가 있다.
두 조각을 그냥 붙여 버리면 이음매를 가로지르는 자리에 원래 없던 아홉 글자가 새로 생긴다. 그 가짜 조각이 MHC에 실려 나가면, 면역계는 종양에 있지도 않은 것을 배우게 된다. 헛수고이거나, 나쁘면 정상 조직을 닮은 것을 배운다.
글리신은 가장 작은 아미노산이고 프롤린은 사슬을 꺾는 아미노산이다. 이 둘을 번갈아 넣으면 이음매가 흐물흐물해져서 프로테아솜의 가위가 거기를 먼저 자른다. 조각들이 깨끗하게 떨어진다.
MITD. 뒤에 붙이는 꼬리. 만들어진 사슬을 소포체에서 세포질로 되돌려 보내 프로테아솜에 넣는다.
polyA 꼬리. 맨 끝에 붙는 A의 행렬. mRNA의 수명 타이머다. 세포는 이 꼬리를 조금씩 갉아먹고, 다 갉히면 그 mRNA를 버린다. 꼬리가 길수록 오래 버틴다.
5 — 같은 뜻, 다른 글자
코돈 최적화는 뜻을 바꾸지 않고 글자만 바꾸는 일이다.
아미노산은 스무 종인데 세 글자 조합은 예순네 가지다. 그래서 같은 아미노산을 가리키는 코돈이 여럿이다. 류신은 여섯 가지, 아르기닌도 여섯 가지.
어느 것을 써도 단백질은 똑같이 나온다. 그런데 속도가 다르다.
코돈을 읽어 아미노산을 날라 오는 것은 tRNA인데, 세포 안에 종류마다 양이 다르게 있다. 흔한 tRNA가 맡은 코돈은 빨리 읽히고, 드문 tRNA가 맡은 코돈에서는 리보솜이 기다린다.
그래서 그 생물이 즐겨 쓰는 코돈으로 갈아 끼우면 같은 서열이 더 빨리, 더 많이 번역된다. 얼마나 잘 갈아 끼웠는지를 0과 1 사이로 나타낸 것이 CAI다.
0.61에서 0.89로. 사람이나 사람 세포주 기준이 아니라 개가 즐겨 쓰는 빈도에 맞췄다는 것이 이 대목의 요점이다.
그리고 서열에는 한 가지가 더 들어갔다. 글자를 바꾼 것이 아니라 글자 자체를 바꿔 끼운 것이다.
mRNA를 이루는 네 글자 가운데 U를 N1-메틸슈도유리딘이라는 변형된 것으로 통째로 갈았다.
이유는 이렇다. 세포에는 바깥에서 들어온 RNA를 알아보는 감시 장치가 여럿 있다. 그 장치들이 걸리면 세포는 번역을 멈추고 경보를 울린다. 백신으로 넣은 mRNA가 읽히기도 전에 꺼져 버린다.
변형된 U는 그 감시망에 덜 걸린다. 같은 서열인데 세포가 덜 화를 낸다. 그러면서 번역은 오히려 잘 된다.
이 발견이 mRNA 백신이 실제로 작동하게 만든 열쇠였고, 그 공로로 2023년에 노벨 생리의학상이 나갔다.
폴이 그 세 줄을 서열 파일에 적어 넣는 데 걸린 시간은 몇 분이었다. 그 몇 분 뒤에 있는 것은 이십 년이었다.
셋째가 LNP 제조였다. 이게 제일 어려운 부분이었다.
제9장 — 나노의 전장, 첫 번째 패배
1 — 첫 번째 배치
팔 교수 실험실에서 LNP 첫 번째 배치를 만들었다.
여기서부터는 다른 종류의 문제였다.
그때까지 폴이 한 일은 전부 계산이었다. 서열을 읽고, 변이를 찾고, 구조를 예측하고, 결합을 계산했다. 틀리면 다시 돌리면 됐다. 하루면 다시 돌아왔다.
이제부터는 물질이었다. 유리병 안에서 실제로 일어나는 일이고, 틀리면 재료가 없어진다.
그리고 이 단계에는 폴이 모르는 것이 아주 많았다.
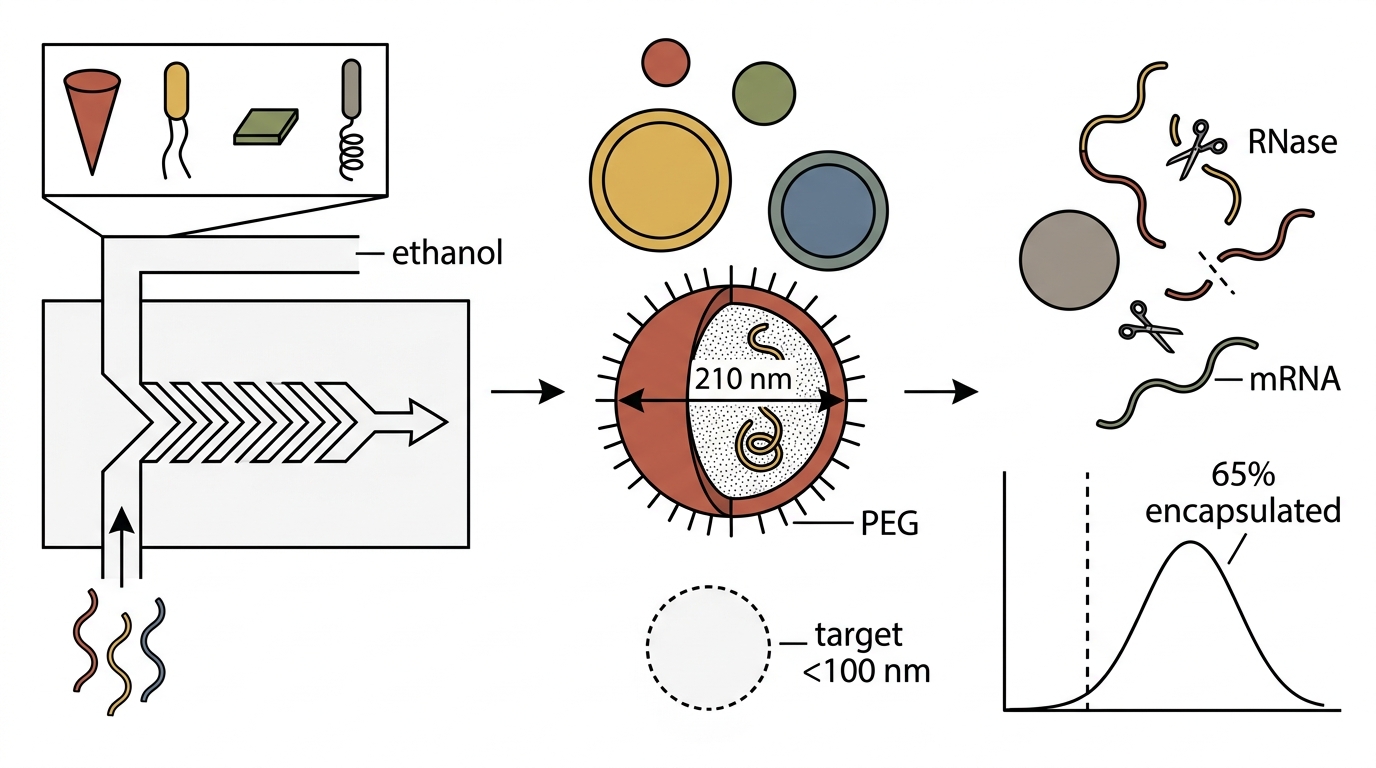
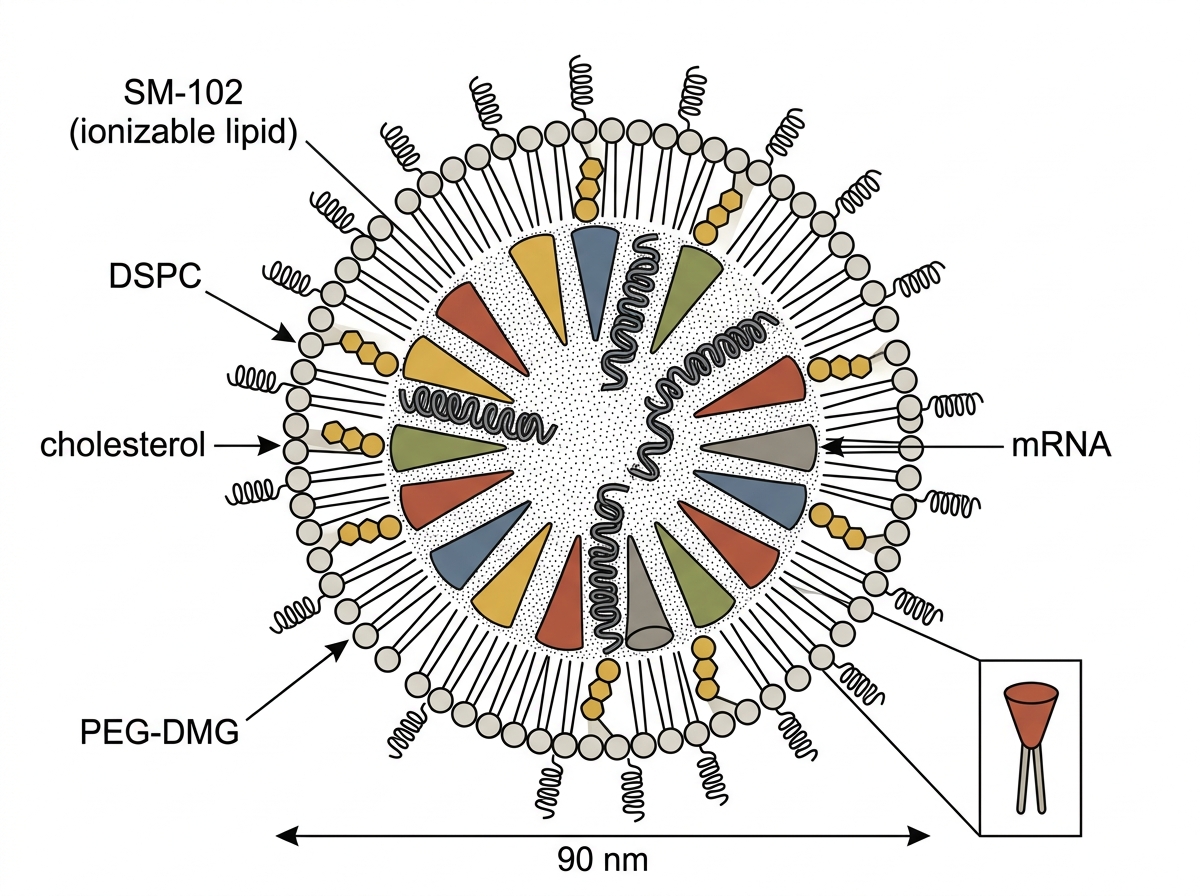
DLin-MC3-DMA 이온화 지질, DSPC, 콜레스테롤, PEG-DMG. 이 네 가지를 에탄올에 녹인 용액과 mRNA를 담은 수용액을 마이크로유체 채널에서 혼합했다. 지질들이 자발적으로 나노입자를 형성했다.
네 가지 지질에는 각각 맡은 일이 있었다.
이온화 지질은 mRNA를 붙잡는다. 산성 조건에서 양전하를 띠어 음전하의 mRNA와 엉킨다. 입자의 심장이다.
DSPC는 인지질이다. 껍질의 뼈대를 만든다.
콜레스테롤은 그 뼈대 사이를 메운다. 너무 물렁하지도 너무 뻣뻣하지도 않게 만드는 것이 이것의 일이다. 지질막에서 콜레스테롤은 늘 그 노릇을 한다.
PEG 지질은 가장 바깥에 붙어 입자가 더 커지지 못하게 막는다.
자발적으로. 이 낱말이 이 문장의 요점이다.
누가 조립하는 것이 아니다. 조건만 맞으면 지질들이 알아서 모인다. 기름이 물 위에서 저절로 방울이 되는 것과 같은 이치다. 기름 분자에게 방울을 만들라고 시키는 사람은 없다.
그래서 편하고, 그래서 어렵다. 조립 순서를 지시할 수 없으니 조건만 바꿀 수 있다. 농도, 속도, 온도, 비율. 손잡이는 그것뿐이다.
DLS로 크기를 쟀다.
210나노미터.
숫자 하나로 실패가 확정됐다.
목표가 100나노미터 이하인데 두 배가 넘었다. 봉입 효율도 65퍼센트였다. mRNA의 삼분의 일이 LNP 바깥에 있다는 뜻이었다. 그 부분은 혈중 RNase에 즉시 분해된다.
2 — 왜 100나노미터인가
100나노미터라는 목표는 임의로 정한 것이 아니다. 위와 아래에서 동시에 눌리는 창이다.
위쪽 한계부터. 입자가 커지면 몸이 알아본다.
혈장 단백질이 표면에 잘 달라붙고, 보체가 붙고, 식세포가 걷어 간다. 비장의 얇은 틈은 200나노미터쯤 되는 것을 걸러 낸다. 조직 안에서도 큰 입자는 잘 움직이지 못한다. 세포와 세포 사이의 틈이 그만큼 넓지 않다.
210나노미터짜리 입자는 만들어진 순간부터 표적이었다.
아래쪽 한계도 있다. 무작정 작으면 되는 것이 아니다.
입자가 작아지면 부피에 비해 표면이 넓어진다. 넣을 자리는 줄고 노출되는 면은 늘어난다. 20나노미터 아래로 내려가면 mRNA 한 가닥을 온전히 감쌀 자리가 나오지 않는다.
그래서 창은 대략 60에서 120나노미터 사이다. 폴이 겨눈 100나노미터는 그 한가운데였다.
그리고 봉입 효율 65퍼센트라는 숫자.
mRNA 세 가닥 중 한 가닥이 입자 밖에 있다는 뜻이다. 밖에 있는 mRNA는 약이 아니다. 몸에 들어가는 순간 RNase가 자른다. 몇 분이면 사라진다.
그러니까 첫 배치는 재료의 삼분의 일을 처음부터 버리고 시작하는 것이었다. 그 삼분의 일은 폴이 3천 달러를 들여 시퀀싱하고, 몇 달을 들여 설계한 서열이었다.
폴이 팔 교수 실험실 사람들과 조건을 바꿔가며 다시 만들었다. 이틀째, 사흘째. 크기가 줄어들었지만 봉입 효율이 올라가지 않았다. 올라갔다 싶으면 크기가 다시 커졌다.
3 — 시소
이 한 문장이 일주일이다.
그 일주일 동안 무슨 일이 있었는지를 풀면 이렇다.
손잡이는 넷이었다. PEG 지질의 양, 유량비, 혼합 온도, 그리고 이온화 지질과 mRNA의 비율.
PEG를 늘리면 입자가 작아진다. PEG가 표면에 빨리 깔려 성장을 일찍 멈추기 때문이다. 그런데 성장을 일찍 멈추면 코어가 다 채워지기 전에 문이 닫힌다. 미처 안으로 들어가지 못한 mRNA가 밖에 남는다.
작아지면 덜 담긴다.
그러면 PEG를 줄인다. 코어가 채워질 시간이 늘어난다. 봉입 효율이 올라간다. 그런데 성장도 함께 늘어나 입자가 커진다.
많이 담으면 커진다.
유량비를 올려도 비슷했다. 에탄올이 빨리 희석되면 입자가 작아지는데, 그만큼 mRNA가 붙잡힐 시간도 짧아진다.
시소였다. 한쪽을 누르면 다른 쪽이 올라갔다.
폴은 조건을 하나씩 바꿔가며 만들고, 재고, 적었다. 하루에 여섯 배치. 배치 하나에 mRNA가 들어간다.
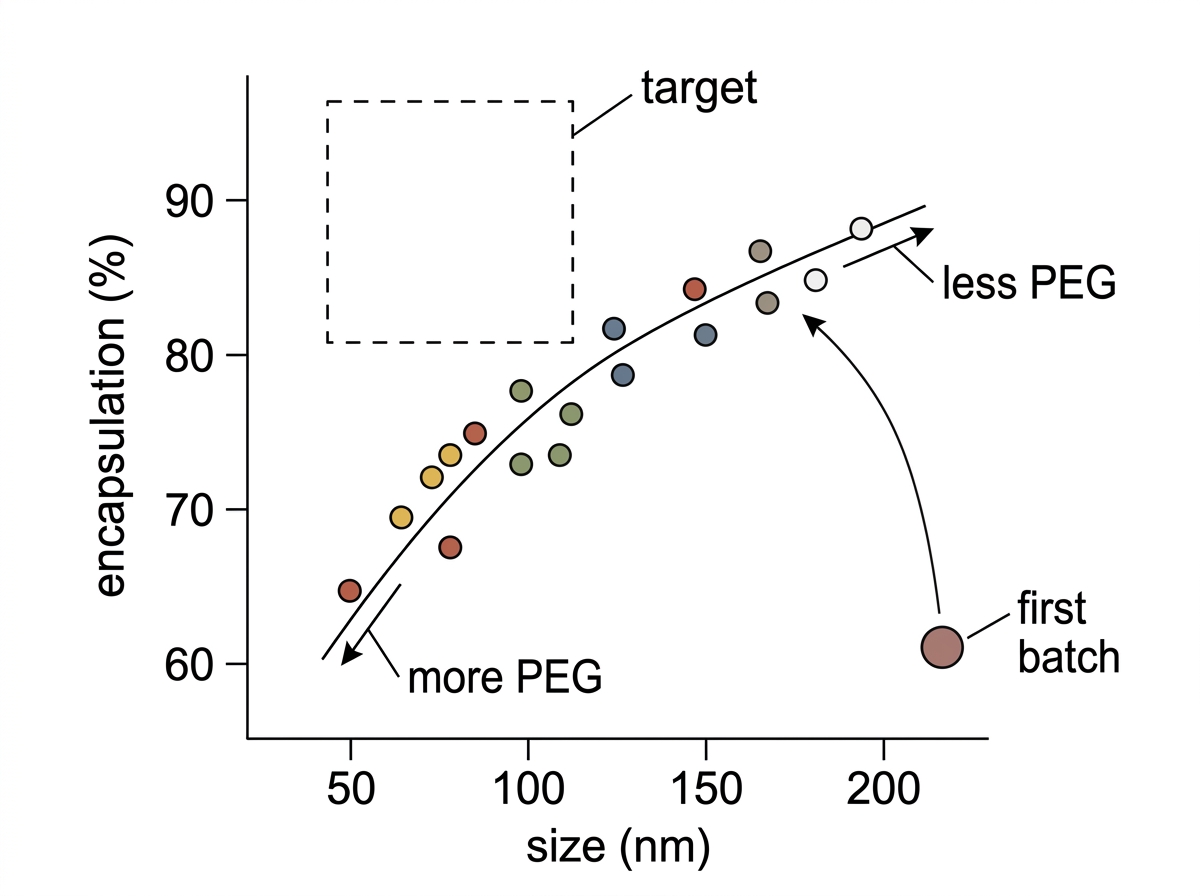
점들이 그래프 위에 쌓였다. 목표 구간을 둘러싸고 있었지만 안으로는 들어가지 않았다. 오른쪽 위로 가면 커지고, 왼쪽 아래로 가면 비었다.
점들이 그리는 모양은 선이었다. 창을 가로지르지 않고 비껴가는 선.
일주일이 지났다.
일주일이라는 말에는 밤이 일곱 번 들어 있다.
폴은 매일 밤 데이터를 정리해 팔에게 보냈고, 매일 아침 다음 조건을 정했다. 로지는 멜버른 집에 있었다.
팔이 말했다. "이마티닙 내성 변이가 활성화 루프를 DFG-in에 고정시켜 버리는 것처럼, 지금 우리 LNP에도 뭔가 근본적인 문제가 있을 수 있어요. 이온화 지질을 바꿔봐야 할 것 같습니다."
4 — 손잡이가 아니라 재료
팔이 한 말의 요점은 근본적인이라는 낱말에 있었다.
조건을 바꾸는 것은 손잡이를 돌리는 일이다. 손잡이를 아무리 돌려도 닿지 않는 자리가 있다면, 문제는 손잡이가 아니라 재료다.
점들이 그리는 선이 창을 비껴간다면, 그 선을 옮겨야 한다. 선의 위치를 정하는 것은 조건이 아니라 지질이다.
7장에서 폴이 본 것과 같은 종류의 판단이었다. 활성화 루프의 각도를 조금씩 바꿔서는 DFG-in에 고정되지 않는다. 바뀐 것은 잔기 하나였다.
"어떤 걸로요?"
"SM-102요. Moderna가 COVID-19 백신에 쓴 이온화 지질입니다."
지질을 바꾼다는 말은 분자 하나를 갈아 끼운다는 뜻이다. 그런데 그 하나가 나머지 전부를 바꾼다.
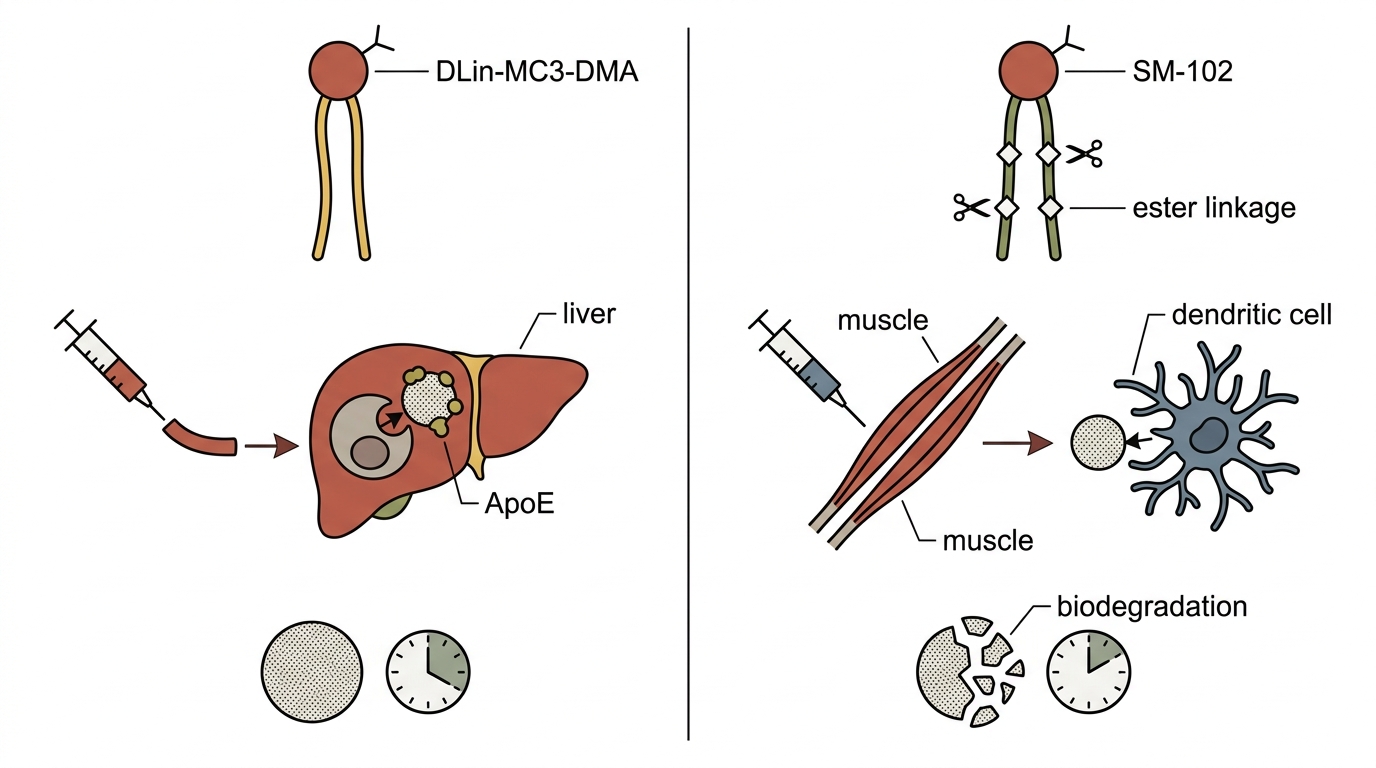
폴이 쓰던 DLin-MC3-DMA는 좋은 지질이었다. 2018년에 승인된 유전성 아밀로이드증 치료제에 쓰인, 세상에서 처음으로 사람에게 허가된 이온화 지질이다. 표준이었고, 그래서 폴이 처음에 고른 것도 그것이었다.
다만 그것은 다른 일을 하려고 만들어진 지질이었다.
MC3는 정맥으로 넣어 간세포에 siRNA를 넣기 위해 설계됐다. 혈액에 들어가면 표면에 아포지단백이 달라붙고, 간세포가 그 아포지단백을 알아보고 입자를 끌어들인다. 간으로 가는 길이 처음부터 설계에 들어 있었다.
폴이 하려는 일은 그것이 아니었다. 근육에 넣어 수지상세포에 mRNA를 넣는 것. 목적지가 다르고, 화물이 다르고, 들어가는 길이 다르다.
그리고 MC3에는 한 가지 성질이 더 있었다. 몸 안에서 잘 분해되지 않는다. 꼬리 부분이 튼튼해서 조직에 오래 남는다. 한 번 넣고 끝나는 치료라면 견딜 만하지만, 반복해서 넣어야 하는 백신에는 부담이다.
SM-102는 그 두 가지를 바꾼 지질이었다.
꼬리 안에 일부러 끊어지기 쉬운 자리를 넣었다. 일을 마치면 몸이 그 자리를 끊어 조각을 치운다. 오래 남지 않는다.
그리고 근육 주사와 백신을 겨냥해 고른 물성이었다. 무엇보다, 그때 이미 수억 명의 팔에 들어간 뒤였다. 어떻게 행동하는지가 알려져 있었다.
폴이 물었다. "구할 수 있어요?"
"주문하면 됩니다. 이 주 걸려요."
첫 번째 패배였다. 그런데 패배가 알려 준 것이 있었다 — 어느 손잡이를 돌려도 안 되는 자리가 있다는 것. 그것을 알아내는 데 일주일과 mRNA 여러 배치가 들었다.
5 — 캘리포니아에서 온 이메일
라첼 알라베나 교수의 이름이 처음 나온 건 이 무렵이었다.
캘리포니아에 있는 마리 마에다라는 사람에게서 이메일이 왔다. Canine Cancer Alliance를 만든 사람이었다. 그녀가 폴의 프로젝트 얘기를 듣고 연락해온 것이었다.
그런 조직이 있다는 것을 폴은 몰랐다.
개의 암을 연구하는 사람들은 세계 어디에나 흩어져 있고 수가 적다. 그래서 서로를 대체로 알고 있다. 어느 대학에 누가 있고 누가 무엇을 하는지가 몇 다리 건너면 닿는다.
폴이 온라인에 남긴 기록을 누군가 읽었고, 그것이 몇 사람을 건너 캘리포니아까지 갔다.
"UQ 개턴 수의학부에 라첼 알라베나 교수가 있어요. 개 암 면역치료를 전문으로 하는 분이에요. 한번 연락해보세요."
폴이 이메일을 보냈다.
라첼이 다음 날 답장을 보냈다. "금요일 오전에 시간이 있어요."
폴은 그 한 줄을 몇 번 다시 읽었다.
마틴도 팔도 이메일 한 통에서 시작됐다. 세 번째였다.
제10장 — 운명적 연결
1 — 오십 분
라첼 알라베나는 브라질 사람이었다.
쉰 대 초반이었고, 목소리가 낮고 명확했다. 처음 오십 분 동안 폴의 파이프라인을 하나씩 검토했다. 어느 부분에서 어떤 문제가 생길 수 있는지, 개의 면역 시스템이 인간과 어떻게 다른지, 개 DLA 유형을 어떻게 다뤄야 하는지.
그 오십 분이 이 이야기에서 가장 중요한 오십 분이었다.
그때까지 폴에게 아니라고 말해 준 사람이 없었다. 마틴은 서열을 만들어 줬고 팔은 입자를 만들어 줬다. 둘 다 자기 몫을 했고, 둘 다 개를 다뤄 본 사람은 아니었다.
라첼은 개를 다뤄 본 사람이었다.
2 — 개는 생쥐가 아니다
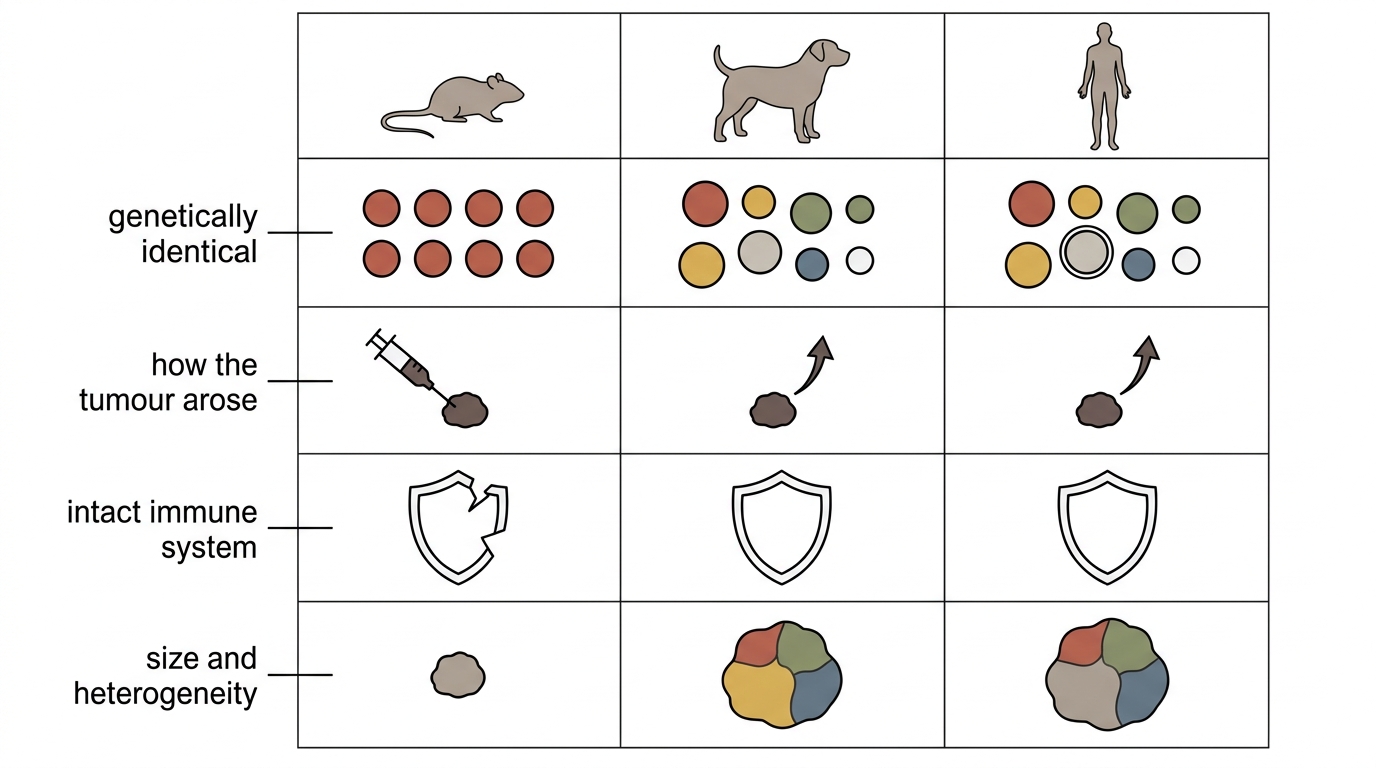
"먼저 좋은 소식부터." 라첼이 말했다. "당신이 하려는 걸 생쥐로 했다면 나는 훨씬 회의적이었을 거예요."
암 연구의 대부분은 생쥐에서 이뤄진다. 그리고 그 결과의 대부분은 사람에게서 재현되지 않는다.
이유는 여러 가지다. 실험용 생쥐는 유전적으로 거의 같은 개체들이다. 형제자매를 수십 세대 교배해 만든 계통이라, 한 마리에서 통한 것이 다른 마리에서도 통한다. 사람은 그렇지 않다.
그리고 생쥐의 종양은 대개 사람이 만든 것이다. 발암물질을 주거나, 배양한 암세포를 주사해 넣는다. 몇 주 만에 자란다.
진짜 종양은 그렇게 생기지 않는다. 몇 년에 걸쳐 변이가 쌓이고, 그동안 면역계와 밀고 당기며 살아남는 법을 배운다. 임상에 도달할 때쯤 종양은 이미 면역계를 다뤄 본 상대다.
개의 종양은 저절로 생긴 것이다.
로지의 비만세포종은 누가 만든 것이 아니다. 면역계가 멀쩡한 몸 안에서, 그 면역계를 피해 가며 자란 것이다. 로지는 사람과 같은 집에 살고 같은 물을 마시고 같은 공기를 마신다.
덩치도 비슷하다. 종양 안이 균일하지 않은 것도, 부위마다 다른 것도, 사람의 종양과 닮았다.
이런 이유로 개의 암을 사람의 암 연구에 잇는 분야가 따로 있다. 비교종양학이라고 부른다.
"그러니까 로지에게 통한다면," 라첼이 말했다. "그건 생쥐에게 통하는 것보다 훨씬 뜻이 있어요."
"통하지 않는다면요?"
"그것도 뜻이 있죠. 다른 뜻이지만."
3 — DLA라는 문제
"이제 나쁜 소식."
라첼이 화면의 한 줄을 가리켰다. NetMHCpan이 뱉은 결합 예측값이었다.
"이 숫자를 얼마나 믿고 있어요?"
폴은 대답하지 못했다.
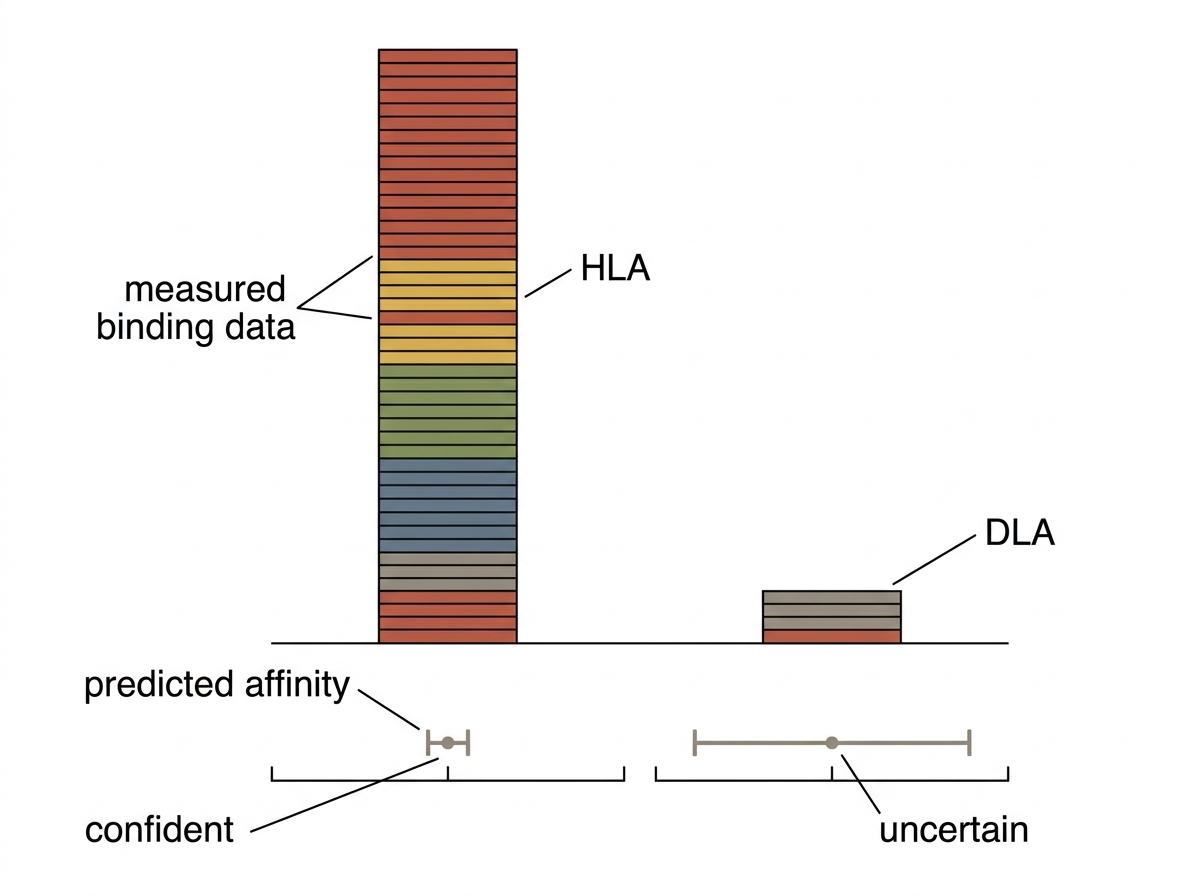
MHC는 종마다 다르다. 사람의 것을 HLA라고 하고 개의 것을 DLA라고 한다. 같은 일을 하는 분자지만 홈의 모양이 다르고, 그러니 들어가는 조각도 다르다.
문제는 자료의 양이었다.
사람의 HLA는 수십 년 동안 수만 개의 대립유전자가 등록됐고, 어떤 펩타이드가 어느 HLA에 붙는지를 실제로 측정한 자료가 수십만 건 쌓여 있다. NetMHCpan 같은 예측 도구는 그 자료를 먹고 자랐다.
개의 DLA는 그 자료가 훨씬 적다. 등록된 대립유전자도 적고, 실제 결합을 측정한 자료는 더 적다.
예측 도구는 사람 자료에서 배운 규칙을 개에 옮겨 적용한다. 홈의 모양이 비슷하니 어느 정도는 옮겨 간다. 어느 정도까지인지는 아무도 모른다.
"화면에 나오는 숫자는 자릿수까지 또렷하죠." 라첼이 말했다. "그런데 그 숫자에 붙어 있어야 할 오차 막대가 개에서는 훨씬 넓어요. 그 막대는 화면에 안 나오고요."
이것은 8장의 그 화면을 다시 보게 만드는 말이었다.
폴이 골라낸 세 개의 신생항원은 예측 점수 순으로 뽑은 것이었다. 그 순위가 사람에서만큼 믿을 만하지 않다면, 셋 중 하나도 실제로는 제시되지 않을 수 있었다.
"그래서 하나만 넣지 않은 건 잘한 거예요." 라첼이 말했다. "셋을 넣었으니 하나만 맞아도 됩니다."
4 — 어떻게 알 것인가
세 번째로 라첼이 물은 것은 확인 방법이었다.
"넣고 나서, 통했는지 안 통했는지를 무엇으로 판단할 거예요?"
종양이 줄어드는 것을 보는 것이 가장 확실하다. 다만 그것은 가장 늦게 나타나고, 나타나지 않아도 면역 반응 자체는 일어났을 수 있다.
면역 반응을 직접 보려면 T세포를 봐야 한다. 표준적인 방법은 혈액에서 T세포를 꺼내 그 아홉 글자짜리 펩타이드를 보여 주고, 반응하는 세포가 인터페론 감마를 뿜는지 세는 것이다. 반응한 세포 하나가 접시 위에 점 하나를 남긴다. 점을 센다.
그런데 그 검사에 필요한 시약은 대부분 사람용과 생쥐용으로 만들어져 있다. 개용은 종류가 적고 구하기 어렵다.
"우리가 가진 걸로 할 수 있는 건 해볼게요." 라첼이 말했다. "다만 못 보는 게 많을 거예요. 그건 미리 알고 시작합시다."
무엇을 보지 못할지를 시작 전에 적어 두는 것. 그것이 이 오십 분에서 라첼이 한 일의 절반이었다.
5 — n이 하나라는 것
그리고 마지막 문제.
개가 한 마리라는 것.
한 마리에게 무언가를 하고 결과를 보는 것으로는 인과를 말할 수 없다. 좋아져도 백신 때문인지 다른 이유인지 알 수 없고, 나빠져도 마찬가지다. 비만세포종은 저절로 느려지기도 하고 갑자기 빨라지기도 한다.
비교할 대상이 없다. 같은 로지에게 백신을 주지 않은 경우를 볼 방법이 없기 때문이다.
그래서 이 일에서 나올 수 있는 결론은 처음부터 정해져 있었다. 이렇게 하는 것이 가능했다. 거기까지다. 이렇게 하면 낫는다는 여기서 나오지 않는다.
그런데 가능했다도 아무것도 아닌 것은 아니다. 한 사람이 노트북과 이메일 몇 통으로 개인 맞춤 mRNA 백신을 설계해서 실제 개에게 투여하기까지 갔다는 것 자체가, 그 전까지 아무도 확인해 본 적 없는 사실이었다.
"그리고 규칙이 있어요." 라첼이 말했다.
사람에게라면 이 일은 시작조차 못 한다. 임상시험 승인이 필요하고, 그 앞에 동물시험과 독성시험과 제조 기준이 있다. 몇 년과 수백만 달러가 든다.
수의학은 다르다. 표준 치료가 실패한 반려동물에게, 보호자가 충분히 알고 동의하고, 대학의 동물윤리위원회가 심의해 승인하면, 아직 허가되지 않은 치료를 시도할 수 있는 길이 있다.
"로지는 이미 수술과 항암을 했고 실패했어요. 그 조건은 충족돼요." 라첼이 말했다. "서류는 제가 씁니다. 그게 제가 여기 있는 이유이기도 하고요."
그게 끝나고 나서 라첼이 말했다.
"솔직히 말할게요. 이게 성공할 가능성이 높다고 생각하지 않아요."
그 말에는 방금까지 오십 분 동안 나온 이유들이 전부 들어 있었다.
예측 점수의 오차 막대. 개의 시약. n이 하나라는 것. 그리고 아직 만들어지지도 않은 입자.
폴이 잠시 멈췄다.
"하지만," 라첼이 이어 말했다. "이 접근이 틀렸다고 생각하지도 않아요. 그리고 나는 틀렸을 가능성이 있는 것들에 관심이 많은 편이에요. 함께 해봅시다. 투여는 제가 맡을게요."
틀렸을 가능성이 있는 것에 관심이 많다는 말은, 결과를 미리 정해 놓지 않았다는 뜻이었다.
폴에게 필요한 것이 그것이었다. 될 거라고 말해 주는 사람이 아니라, 안 될 이유를 전부 적어 놓고도 해보자고 하는 사람.
6 — 그날 밤
그날 밤 폴은 로지와 소파에 앉아 있었다.
로지의 뒷다리 혹이 처음 발견된 날보다 조금 더 커진 것 같았다. 만져보면 여전히 단단했다.
폴은 로지에게 말하고 싶었다. 지금 어떤 일들이 진행되고 있는지, 마틴과 팔과 라첼이라는 사람들이 각자 뭘 하고 있는지, 최종 목표가 뭔지. 물론 로지는 알아듣지 못할 것이었다.
그래도 폴은 말했다.
"라첼 교수님이 돕겠대, 로지. 이제 팀이 됐어."
로지가 폴 손을 핥았다.
제11장 — 최대의 위기: 나노입자와 식세포의 전쟁
1 — 백신이 완성됐다
백신이 완성됐다.
팔 교수 실험실에서 IVT 반응으로 mRNA를 합성했다. 수율 148마이크로그램 퍼 밀리리터. RNA 무결성 지수(RIN) 8.4. 충분했다.
RIN은 RNA가 얼마나 온전한지를 1에서 10 사이의 수로 나타낸 값이다. 10이면 한 가닥도 끊어지지 않은 상태, 1이면 다 부서진 상태다. mRNA는 만들어지는 순간부터 끊어지기 시작한다. 손에 묻은 RNase 하나면 충분하다. 8.4는 쓸 수 있다는 뜻이었다.
그리고 SM-102 이온화 지질 기반으로 LNP를 다시 만들었다.
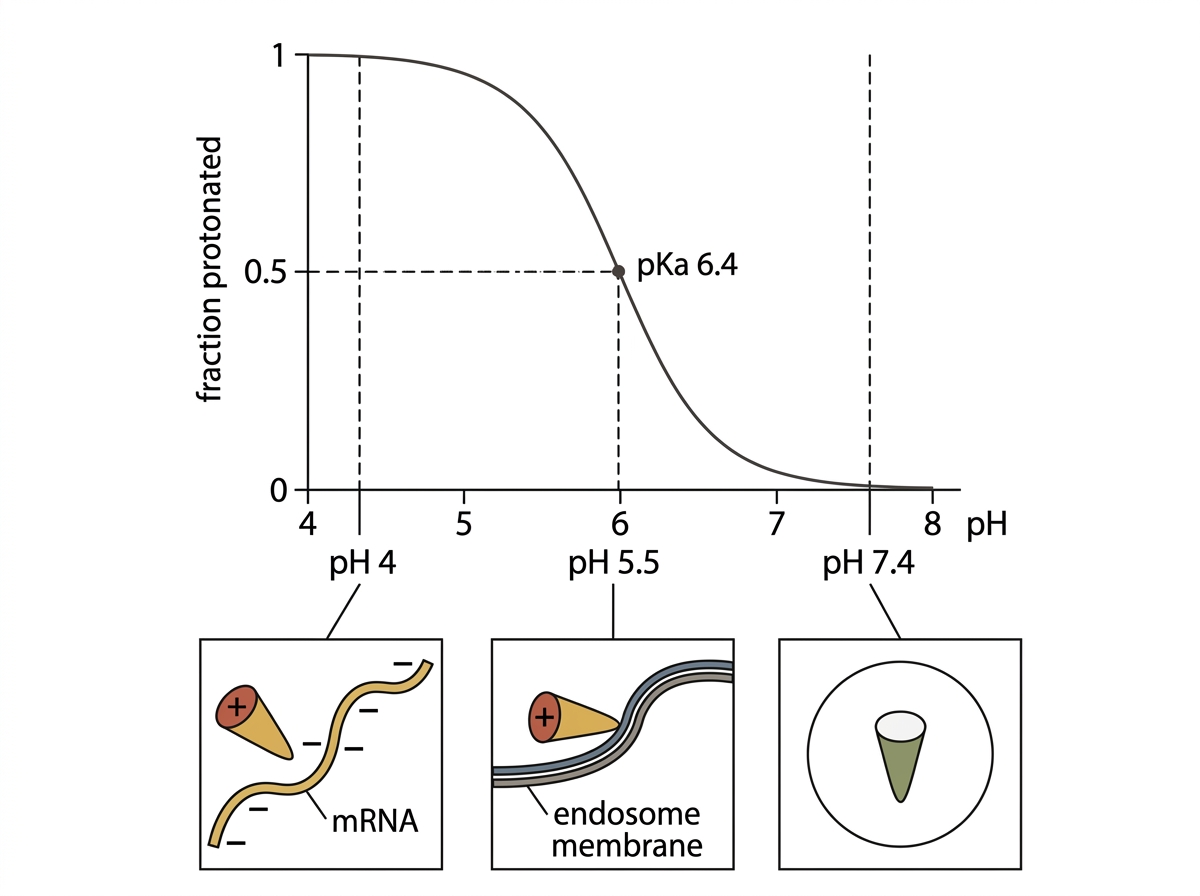
SM-102. pKa 6.68. Moderna COVID-19 백신 mRNA-1273에 쓰인 이온화 지질이었다. 중성 환경에서는 전하가 없어서 면역 반응을 최소화하고, 엔도솜 안의 산성 환경에서는 양전하를 띠어서 막을 불안정하게 만든다. 이게 엔도솜 탈출의 핵심이었다.
2 — mRNA를 가두는 법
mRNA를 나노입자 안에 넣는다는 말은 어감이 잘못됐다. 누가 뚜껑을 열고 집어넣는 것이 아니다. 빈 캡슐이 먼저 있고 거기에 화물을 담는 것도 아니다. 화물과 껍데기는 같은 순간에 함께 생긴다.
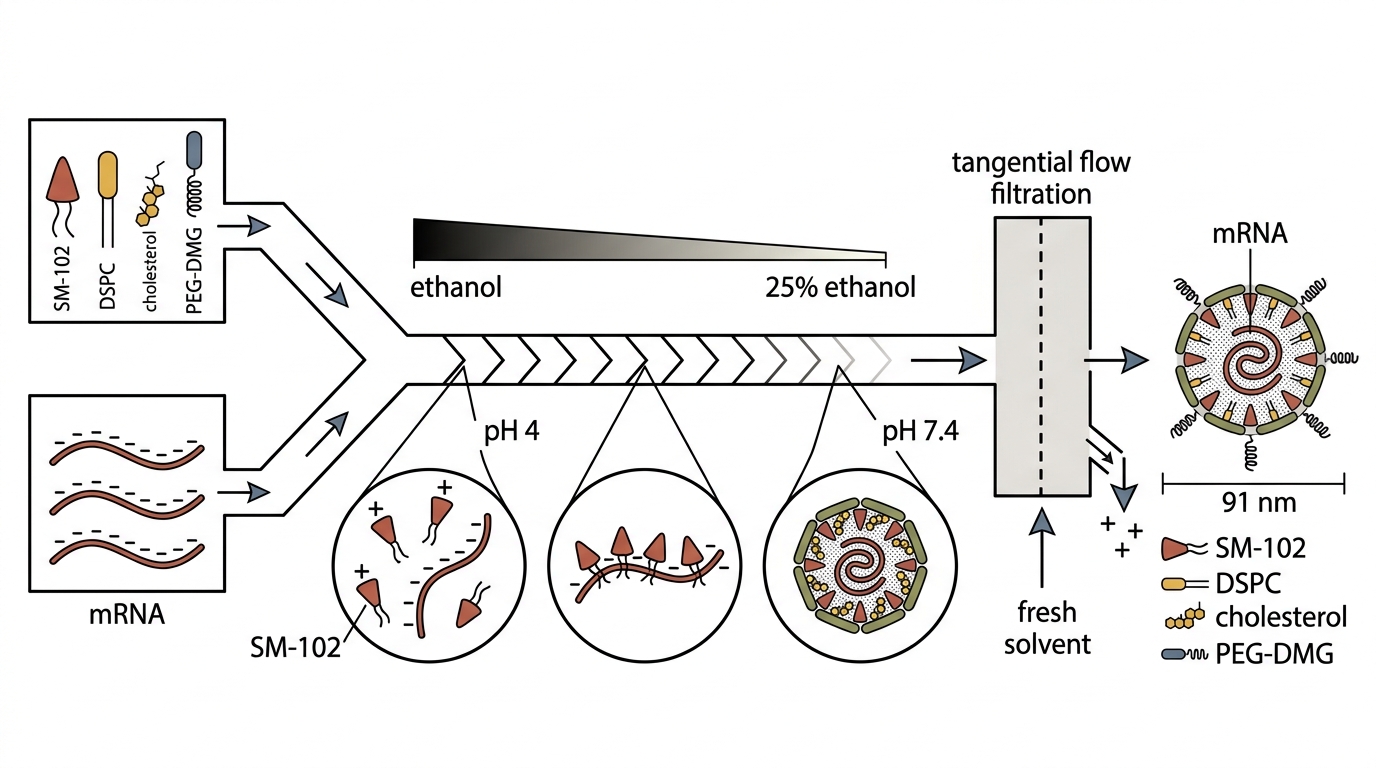
시작은 두 개의 액체다.
한쪽은 에탄올이다. 네 가지 지질이 녹아 있다. SM-102가 50, DSPC가 10, 콜레스테롤이 38.5, PEG-DMG가 1.5. 몰 비율이다. Moderna가 COVID-19 백신에서 쓴 비율과 거의 같았다.
다른 쪽은 물이다. 정확히는 pH 4의 산성 완충액이다. 그 안에 IVT로 만든 mRNA가 들어 있다.
pH 4. 이 숫자가 전부다.
SM-102의 3급 아민은 pKa가 6.68이다. 주변 pH가 6.68보다 낮으면 양성자를 붙잡아 양전하를 띤다. pH 4는 6.68보다 한참 아래다. 그러니까 이 완충액 안에서 SM-102는 확실하게 플러스다.
mRNA는 마이너스다. 뉴클레오타이드 하나마다 인산기가 하나씩 달려 있고, 인산기는 물속에서 음전하를 띤다. 폴이 설계한 폴리에피토프 mRNA는 천 개가 조금 안 되는 뉴클레오타이드였다. 마이너스가 천 개쯤 매달린 긴 실이라는 뜻이다.
플러스와 마이너스를 같은 통에 넣으면 붙는다. 그게 전부다.
문제는 어떻게 섞느냐였다.
두 액체를 비커에 붓고 저으면 안 된다. 어떤 자리는 먼저 섞이고 어떤 자리는 나중에 섞인다. 먼저 섞인 자리에서 생긴 덩어리는 나중에 도착하는 지질을 계속 받아 먹으며 커진다. 9장의 210나노미터는 그렇게 나온 크기였다.
그래서 마이크로유체 채널을 쓴다.
머리카락보다 가는 통로 두 개가 Y자로 만난다. 합쳐진 통로의 바닥에는 갈매기 모양 홈이 줄줄이 파여 있다. 액체가 그 위를 지나가면 흐름이 접힌다. 다음 홈에서 또 접힌다. 종이를 스무 번 접으면 백만 겹이 되는 것과 같은 이치다.
두 액체가 완전히 섞이는 데 걸리는 시간은 밀리초 단위다. 모든 mRNA 가닥이 같은 순간에 같은 조건을 만난다. 마이크로유체 채널이 사는 이유는 그것 하나다.
물 쪽이 지질 쪽보다 세 배 빠르게 흐른다. 유량비 3 대 1. 합쳐진 직후 에탄올 농도는 25퍼센트로 떨어진다.
그 순간 지질들은 갈 곳을 잃는다.
지질은 에탄올에는 녹고 물에는 녹지 않는다. 에탄올 농도가 40퍼센트 아래로 내려가는 순간 지질은 더 이상 녹아 있을 수 없게 되어 서로에게 달라붙는다. 그리고 그 자리에는, 양전하를 띤 SM-102와 음전하를 띤 mRNA가 이미 손을 잡고 있다.
mRNA가 안쪽으로 말려 들어간다. SM-102가 그것을 감싼다. 그 바깥으로 DSPC와 콜레스테롤이 껍질을 만든다. 가장 바깥에 PEG-DMG가 붙는다.
입자 하나가 만들어지는 데 걸린 시간은 밀리초였다.
PEG-DMG의 몫은 여기서 정해진다.
지질 덩어리는 가만두면 계속 커진다. 옆의 덩어리와 만나면 합쳐지기 때문이다. PEG-DMG는 그 표면에 붙어서 더 붙지 못하게 막는다. 그러니까 PEG-DMG의 양이 입자의 크기를 정한다. 많이 넣으면 일찍 멈춰 작아지고, 적게 넣으면 늦게 멈춰 커진다.
1.5퍼센트. 그 숫자가 91나노미터를 만들었다.
마지막 단계는 산을 걷어내는 일이다.
접선 흐름 여과로 완충액을 갈아낸다. pH 4의 산성 완충액이 빠지고 pH 7.4의 인산 완충액이 들어온다. SM-102가 쥐고 있던 양성자를 놓는다. 전하가 사라진다.
이제 입자의 바깥은 중성이다. 아무것도 끌어당기지 않는다. 그런데 그 안쪽 코어에는 mRNA가 SM-102와 엉킨 채 갇혀 있다. 바깥은 조용하고 안은 단단하다.
이것이 봉입이다. 문을 닫아 가둔 것이 아니라, 닫힐 자리에 함께 있었기 때문에 갇힌 것이다.
3 — 세 개의 숫자
DLS 결과가 나왔다.
DLS는 입자에 레이저를 쏘고 흩어져 나온 빛이 얼마나 빨리 깜빡이는지를 본다. 작은 입자는 물 분자에 밀려 빠르게 흔들리므로 빛도 빠르게 깜빡인다. 큰 입자는 느리다. 깜빡임의 속도에서 크기를 거꾸로 계산한다.
91나노미터. PDI 0.09.
앞의 수는 평균 지름이다. 뒤의 수 PDI는 크기가 얼마나 고른지를 나타낸다. 0이면 모든 입자가 똑같은 크기고, 1에 가까우면 제각각이다. 0.09는 한 반 학생들의 키가 전부 몇 센티미터 안에 들어와 있는 상태다. 9장의 첫 배치는 0.31이었다.
봉입 효율 93.8퍼센트.
이 숫자는 리보그린이라는 색소로 잰다.
리보그린은 RNA 사이에 끼어들면 빛을 낸다. 다만 입자 안에 갇힌 RNA에는 닿지 못한다. 그래서 두 번 잰다. 한 번은 그냥, 한 번은 계면활성제를 넣어 입자를 통째로 터뜨린 다음에.
그냥 쟀을 때 나온 빛은 바깥에 있던 mRNA다. 터뜨리고 쟀을 때 나온 빛은 전부다. 둘의 차이를 전체로 나눈 것이 봉입 효율이다.
93.8퍼센트. mRNA 천 가닥 중 938가닥이 안에 있었다는 뜻이다. 나머지 62가닥은 바깥에 노출된 채였고, 그것들은 몸에 닿는 즉시 RNase에 잘린다. 처음부터 없는 셈 치면 되는 양이었다.
팔이 말했다. "됐어요."
4 — 나노입자와 식세포의 전쟁
그런데 만들어진 것과 도착하는 것은 다른 문제다.
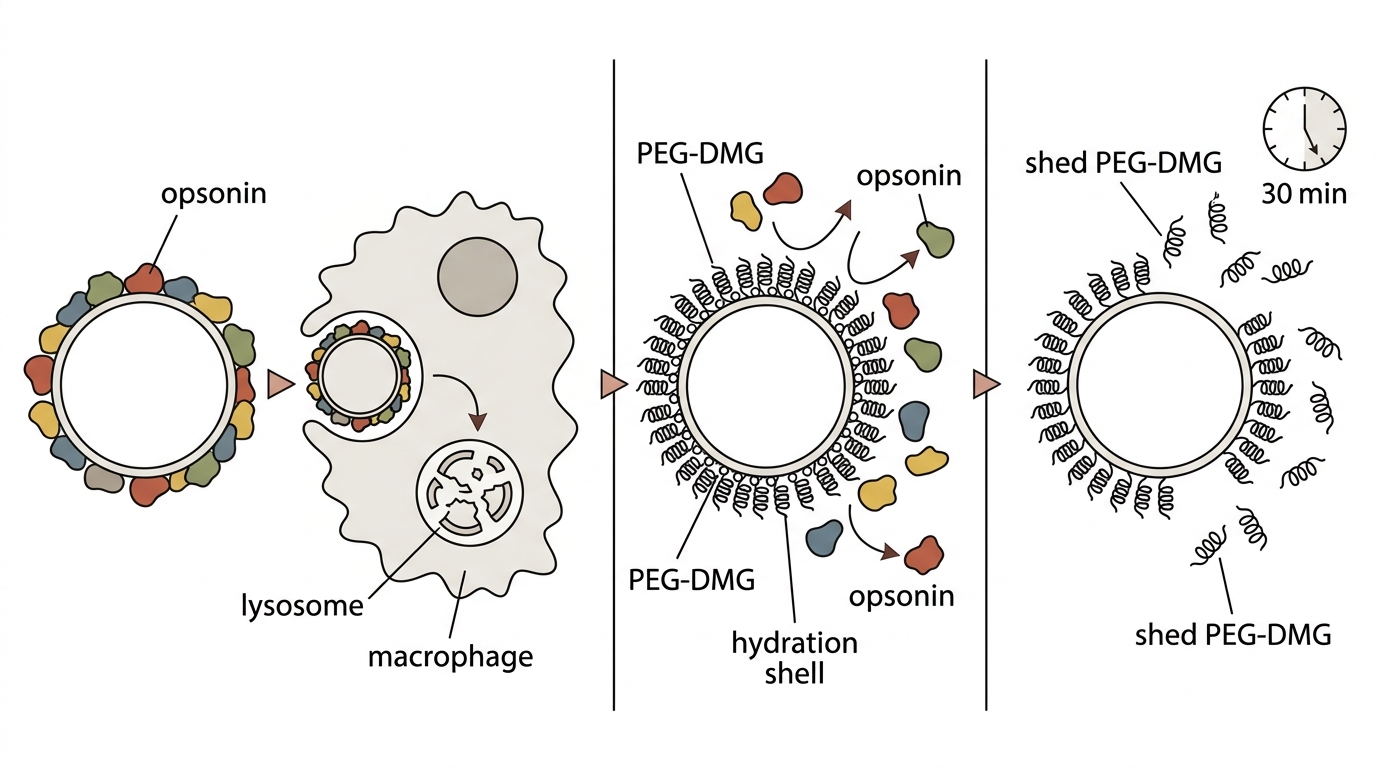
로지 몸 안에 들어간 91나노미터짜리 구체는 낯선 물체다. 몸에는 낯선 물체를 처리하는 조직이 이미 갖춰져 있다. 단핵식세포계라고 부른다. 간의 쿠퍼세포, 비장의 대식세포, 조직 곳곳에 박혀 있는 식세포들.
이들이 하는 일은 하나다. 삼킨다.
문제는 무엇을 삼킬지 어떻게 정하느냐다. 눈이 달린 것도 아니다. 답은 표면이다.
나노입자가 체액에 들어가면 몇 초 안에 표면이 단백질로 덮인다. 알부민, 아포지단백, 면역글로불린, 보체 단백질. 이 껍질을 단백질 코로나라고 부른다.
식세포는 나노입자를 보는 것이 아니다. 그 위에 붙은 단백질을 본다. 보체 C3b가 붙어 있으면 삼킨다. IgM이 붙어 있으면 삼킨다. 이 표시를 옵소닌이라 하고, 표시하는 일을 옵소닌화라고 한다. 몸이 붙이는 압류 딱지 같은 것이다.
9장의 210나노미터 입자가 그래서 무너졌다. 크기가 200나노미터를 넘어가면 보체가 훨씬 잘 붙는다. 비장의 얇은 틈은 그쯤 되는 것을 걸러낸다. 그 배치는 만들어지자마자 표적이었다.
PEG-DMG는 그 문제에 대한 답이다.
폴리에틸렌글리콜 사슬은 물 분자를 붙잡아 입자 표면에 얇은 물 껍질을 만든다. 단백질이 표면에 닿으려면 그 물을 먼저 밀어내야 하는데, 그러기가 어렵다. 그래서 코로나가 잘 생기지 않는다. 딱지가 붙지 않는다. 삼켜지지 않는다.
그런데 PEG는 두 번 배신한다.
첫 번째. PEG가 붙어 있는 한 입자는 세포막과도 잘 융합하지 못한다. 식세포를 막아 주는 그 물 껍질이, 우리가 들어가고 싶은 세포로 들어가는 것도 막는다. 문헌에서는 이것을 PEG 딜레마라고 부른다.
두 번째. 몸은 PEG에도 항체를 만든다. 항-PEG IgM이 생기고 나면 두 번째 투여분은 첫 번째보다 훨씬 빨리 간으로 끌려가 사라진다. 가속 혈중 제거 현상이라고 한다. 잘 듣던 약이 두 번째부터 안 듣는 것이다.
그래서 PEG-DMG의 꼬리는 일부러 짧게 만들어져 있다. 탄소 열네 개짜리 사슬 두 개. 이 길이로는 지질막을 오래 붙들고 있지 못해서, PEG-DMG는 몇십 분 안에 입자 표면에서 미끄러져 나와 체액에 녹아버린다.
벗겨지도록 설계된 외투였다.
몸에 들어갈 때는 입고 있고, 세포에 닿을 때쯤에는 벗겨져 있다. 그것이 설계였다.
근육 주사에는 유리한 점이 하나 더 있었다. 정맥으로 넣으면 입자의 대부분이 간으로 쓸려 간다. 근육에 넣으면 대부분이 그 자리에 남는다. 거기서 기다리고 있는 식세포는 쿠퍼세포가 아니라 조직 상주 수지상세포다.
수지상세포는 이 이야기에서 적이 아니다. 폴이 다섯 달 동안 찾아온 세포다.
그러니까 이것은 이상한 전쟁이었다. 삼켜지면 지는 전쟁이 아니라, 누구에게 삼켜지느냐가 전부인 전쟁.
5 — 그런데 문제가 생겼다
그런데 문제가 생겼다.
수지상세포 배양 실험에서 LNP가 엔도솜을 탈출하지 못하는 것 같다는 결과가 나왔다. mRNA가 세포 안으로 들어가긴 하는데, 세포질로 빠져나오지 못하고 엔도솜 안에 갇혀 버린다는 것이었다.
그 말이 무슨 뜻인지 알려면 삼켜진 다음에 무슨 일이 일어나는지를 먼저 알아야 한다.
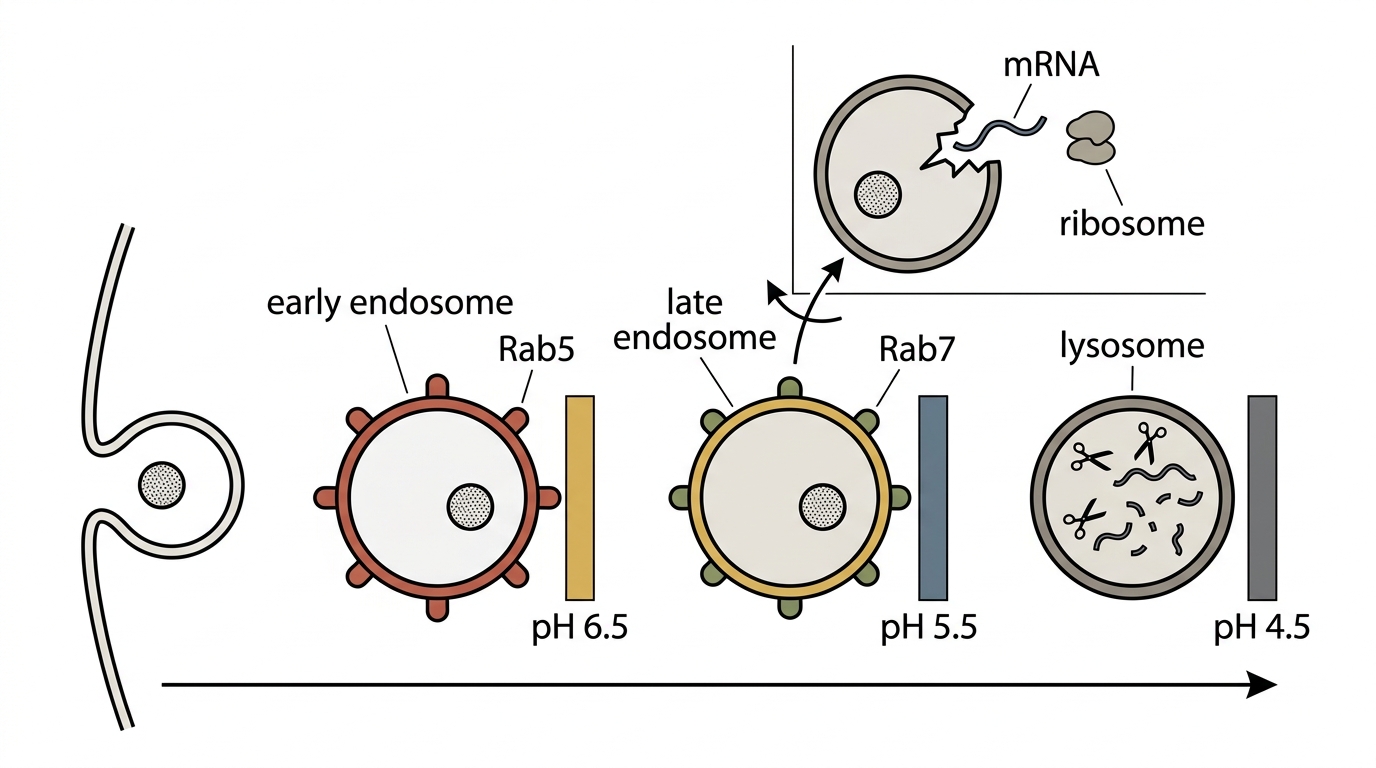
세포가 무언가를 삼키면 세포막이 오목하게 들어가 주머니를 만들고, 그 주머니가 떨어져 나와 세포 안으로 들어온다. 그 주머니가 엔도솜이다. 그리고 여기서 사람들이 가장 자주 놓치는 것이 하나 있다.
엔도솜 안은 아직 세포 바깥이다.
막 하나가 여전히 가로막고 있다. 세포 안에 들어왔지만 세포질에는 닿지 못한 상태다. mRNA가 리보솜을 만나려면 그 막을 뚫고 나와야 한다. 봉투째 집 안에 들어온 편지와 같다. 봉투를 뜯지 않으면 읽히지 않는다.
엔도솜은 가만있지 않는다. 시간이 지나면서 성숙한다.
초기 엔도솜. pH 6.5쯤. 표면에 Rab5라는 표지 단백질이 붙어 있다.
후기 엔도솜. pH 5.5. Rab5가 떨어져 나가고 Rab7이 붙는다.
리소솜. pH 4.5. 카텝신과 뉴클레아제가 가득 찬 소각로다. 여기까지 끌려오면 mRNA는 조각난다.
시계는 대략 삼십 분에서 한 시간이다. 그 안에 나오지 못하면 끝이다.
형광 현미경 이미지를 보면, LNP를 나타내는 빨간 점과 리소솜을 나타내는 초록 점이 겹쳐 있었다. 공동 국소화(colocalization) 비율이 너무 높았다. LNP가 리소솜과 융합해서 분해되고 있다는 뜻이었다.
빨간색은 mRNA에 붙여 둔 형광 색소였다. 초록색은 리소트래커였다. 산성인 구획에만 쌓여서 빛나는 염료라, 초록 점 하나가 리소솜 하나다.
두 색이 같은 자리에 있으면 겹쳐서 노랗게 보인다. 얼마나 겹치는지를 눈이 아니라 수로 나타낸 것이 공동 국소화 계수다.
피어슨 계수 0.82. 1에 가까울수록 두 색이 완전히 같은 곳에 있다는 뜻이다. 0.82는 빨간 점의 거의 전부가 초록 점 안에 들어앉아 있다는 말이었다.
살아 있는 mRNA는 세포질에 안개처럼 흩어져 있어야 한다. 흩어진 빨강은 거의 없었다.
"왜 이럴까요?" 폴이 물었다.
팔이 한참 생각하다가 말했다. "SM-102의 pKa를 생각해보세요. 6.68이에요. 개 수지상세포 엔도솜의 pH가 예상보다 빨리 낮아지는 게 아닐까요. 그러면 SM-102가 너무 일찍 양전하를 띠어서 막 표면에 달라붙어버릴 수 있어요. 탈출 타이밍이 맞지 않는 거죠."
폴은 그 말을 이해하는 데 시간이 걸렸다.
pKa 6.68이라는 값은 SM-102를 물에 풀어 놓고 잰 것이다. 그런데 실제 SM-102는 물에 풀려 있지 않다. 다른 지질들과 빽빽하게 붙은 채 입자 표면에 박혀 있다. 이웃한 분자들이 하나둘 양전하를 띠기 시작하면 서로 밀어내기 때문에, 뒤에 오는 분자는 양성자를 받기가 점점 어려워진다.
그래서 입자 안에서의 pKa는 시험관에서 잰 값과 다르다. 이것을 겉보기 pKa라고 부른다. 이 값이 6.2와 6.5 사이일 때 LNP가 가장 잘 작동한다는 것이 여러 논문의 공통된 결론이었다.
6.68은 그 창의 위쪽 문턱이었다. 인간 세포에서는 문제가 되지 않았다. 개의 세포는 더 빨리 내려갔다.
너무 일찍 양전하를 띤 SM-102는 가장 가까이 있는 막에 달라붙는다. 그 막은 뚫어야 할 막이 아니라 그냥 초기 엔도솜의 벽이다. 달라붙은 채로 함께 리소솜까지 실려 간다.
열쇠가 맞지 않는 것이 아니었다. 열쇠를 문 앞이 아니라 복도에서 꺼낸 것이었다.
그건 큰 문제였다. 이 문제를 해결하지 못하면 백신이 작동하지 않는다.
6 — 나흘
나흘 동안 폴은 논문들을 다시 읽었다.
개 수지상세포의 엔도솜 산성화 속도를 다룬 논문은 거의 없었다. 직접 실험해서 측정하는 수밖에 없었다.
팔 교수 실험실에서 pH 감응성 형광 탐침을 이용해 엔도솜 내 pH 변화를 실시간으로 측정했다. 결과를 보니 개 수지상세포의 엔도솜은 인간 세포보다 약 15분 빨리 산성화됐다. pH 5.5에 도달하는 시간이 더 짧았다.
방법은 이랬다. 형광 색소 두 가지를 붙인 덱스트란을 세포에 먹인다. 하나는 pH가 내려가면 밝기가 변하는 색소, 다른 하나는 pH와 상관없이 일정한 색소. 두 밝기의 비를 보면 그 순간의 pH를 알 수 있다.
색소를 하나만 쓰면 안 된다. 어두워진 것이 pH가 내려가서인지 세포가 조금밖에 먹지 않아서인지 구분할 수 없기 때문이다. 두 번째 색소는 그래서 있다. 기준자다.
결과를 그래프로 겹쳐 그렸다. 인간 수지상세포의 곡선과 개 수지상세포의 곡선. 모양은 같았고, 개의 곡선이 통째로 왼쪽에 밀려 있었다.
15분. 사람에게 맞춰 놓은 시계가 개에게는 15분 빨랐다.
폴이 pH 조건을 조정해서 새로운 LNP 배치를 만들었다. 마이크로유체 혼합 비율과 온도를 달리했다.
바꾼 것은 세 가지였다.
하나. 유량비를 3 대 1에서 4 대 1로 올렸다. 에탄올이 더 급하게 희석되면 지질이 더 급하게 뭉치고, 코어의 배열이 더 촘촘해진다. 촘촘할수록 이웃끼리 밀어내는 힘이 커지므로 겉보기 pKa는 내려간다.
둘. 혼합 온도를 상온에서 4도로 낮췄다. 같은 이유였다.
셋. PEG-DMG를 1.5퍼센트에서 1.8퍼센트로 올렸다. 입자가 조금 작아지고, 외투가 조금 더 빨리 벗겨진다.
그리고 다시 쟀다. 겉보기 pKa는 TNS라는 색소로 잰다. TNS는 표면이 양전하를 띠고 있으면 달라붙어 빛을 낸다. pH를 3에서 9까지 바꿔가며 밝기를 재고, 그렇게 그린 곡선의 중간점을 읽는다.
6.41.
창 안쪽으로 들어왔다.
88나노미터. PDI 0.11. 봉입 효율 95.1퍼센트.
형광 현미경으로 다시 봤다.
빨간 점과 초록 점이 분리됐다.
피어슨 계수 0.31.
mRNA가 세포질로 빠져나오고 있었다.
제12장 — 클라이맥스: 엔도솜의 탈출
1 — 됐어요
팔 교수가 그 이미지를 보고 조용히 웃었다.
"됐어요."
폴은 한참 그 이미지를 봤다. 세포질 안에서 빨갛게 흩어진 점들. 엔도솜 밖으로 나온 LNP들이었다. 그 안의 mRNA가 이제 세포질에서 리보솜을 만날 수 있었다.
그게 왜 그렇게 됐는지는 이제 명확했다.
폴은 그 과정을 처음부터 다시 따라가 보았다. 한 계단씩, 천천히.
2 — 세 개의 얼굴
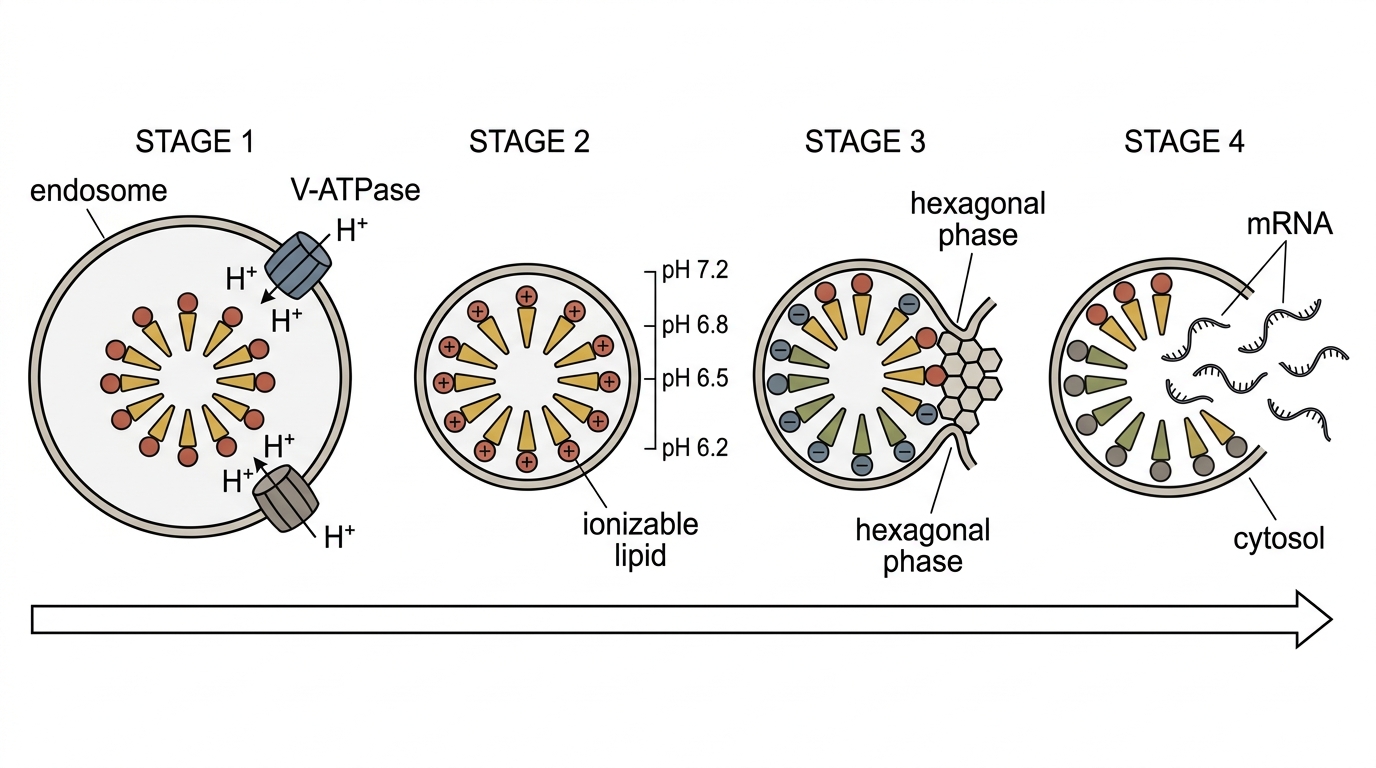
pH가 7.4였을 때는 SM-102가 전하를 띠지 않는다. LNP는 PEG 수화층으로 보호받으며 혈액 속을 돌아다닌다. 면역 세포가 이것을 위험 물질로 인식하지 않는다.
이것이 이온화 지질이라는 낱말의 요점이다.
언제나 양전하를 띠고 있는 지질도 있다. 그런 지질은 mRNA를 아주 잘 붙잡는다. 문제는 몸에 들어간 다음이다. 세포막은 바깥면이 음전하를 띠고 있어서, 양전하를 띤 입자는 아무 세포에나 들러붙는다. 혈구를 뭉치게 만들고, 간에 쌓이고, 염증을 일으킨다. 1세대 유전자 전달체가 임상에서 번번이 무너진 자리가 거기였다.
이온화 지질은 필요할 때만 양전하를 띤다.
만들 때는 pH 4. 플러스. mRNA를 붙잡는다.
몸속에서는 pH 7.4. 무전하. 아무것도 건드리지 않는다.
엔도솜 안에서는 다시 산성. 다시 플러스. 막을 부순다.
같은 분자가 세 번 다른 얼굴을 한다. 그 세 얼굴을 pH 하나가 조종한다. 폴은 이 설계를 처음 이해했을 때 한참 앉아 있었다. 어려운 부품을 하나 더 붙인 것이 아니라, 부품 하나에 세 가지 일을 시킨 것이었다.
3 — 삼켜진다
수지상세포가 LNP를 삼키면, 클라트린 매개 세포내이입으로 엔도솜 안에 들어간다.
클라트린은 다리가 셋 달린 단백질이다. 세 다리가 가운데서 만난 삼각 별 모양. 이것들이 세포막 안쪽에 모여 서로 다리를 걸면 축구공 같은 격자가 짜인다. 격자가 짜이는 만큼 막이 안쪽으로 끌려 들어간다.
격자가 공 모양으로 닫히면 다이나민이라는 단백질이 그 목을 조른다. 소포가 떨어져 나온다. 지름 100나노미터쯤. 91나노미터짜리 LNP 하나가 딱 맞게 들어간다.
그리고 여기서 대부분이 사라진다.
세포 안으로 들어온 입자 가운데 상당수는 세포질로 가지 않는다. Rab11이 붙은 재활용 엔도솜에 실려 세포 밖으로 도로 나간다. 연구들은 그 비율을 60에서 70퍼센트쯤으로 본다. 들어온 문으로 그대로 되나가는 것이다.
남은 것들만 안쪽으로 간다.
4 — 계단을 내려간다
내려가는 이유는 펌프 때문이다. V형 양성자 펌프. 엔도솜 막에 박혀 있는 회전식 기계다.
막 안쪽에 고리 모양의 회전자가 있고, ATP 하나가 분해될 때마다 축이 조금씩 돌아간다. 축이 한 바퀴 돌 때마다 수소 이온 여러 개가 막을 가로질러 안으로 밀려 들어간다. 물레방아를 거꾸로 돌려 물을 퍼 올리는 셈이다.
수소 이온이 쌓이면 pH가 내려간다. 초기 엔도솜에서 후기 엔도솜까지 삼십 분 남짓, 그 사이에 pH는 6.5에서 5.5로 떨어진다.
LNP는 그 계단을 함께 내려간다.
pH 7.0. pH 6.8. pH 6.5. pH 6.41. 고쳐 만든 입자의 겉보기 pKa에 도달.
이 순간부터 SM-102가 양전하를 띠기 시작한다. 양전하를 띤 SM-102가 음전하를 띤 엔도솜 내막 지질을 잡아당긴다. 두 막이 접촉하고, 지질들이 뒤섞인다. 막이 불안정해지고, 팽창하고, 터진다.
5 — 원뿔
여기서부터가 이 이야기 전체에서 가장 이해하기 어려운 대목이다.
양전하를 띤 SM-102가 음전하를 띤 막 지질을 끌어당긴다는 것까지는 쉽다. 그런데 끌어당긴다고 막이 터지지는 않는다. 자석 두 개가 붙는다고 자석이 깨지지는 않는 것과 같다.
막이 터지는 이유는 전하가 아니다. 모양이다.
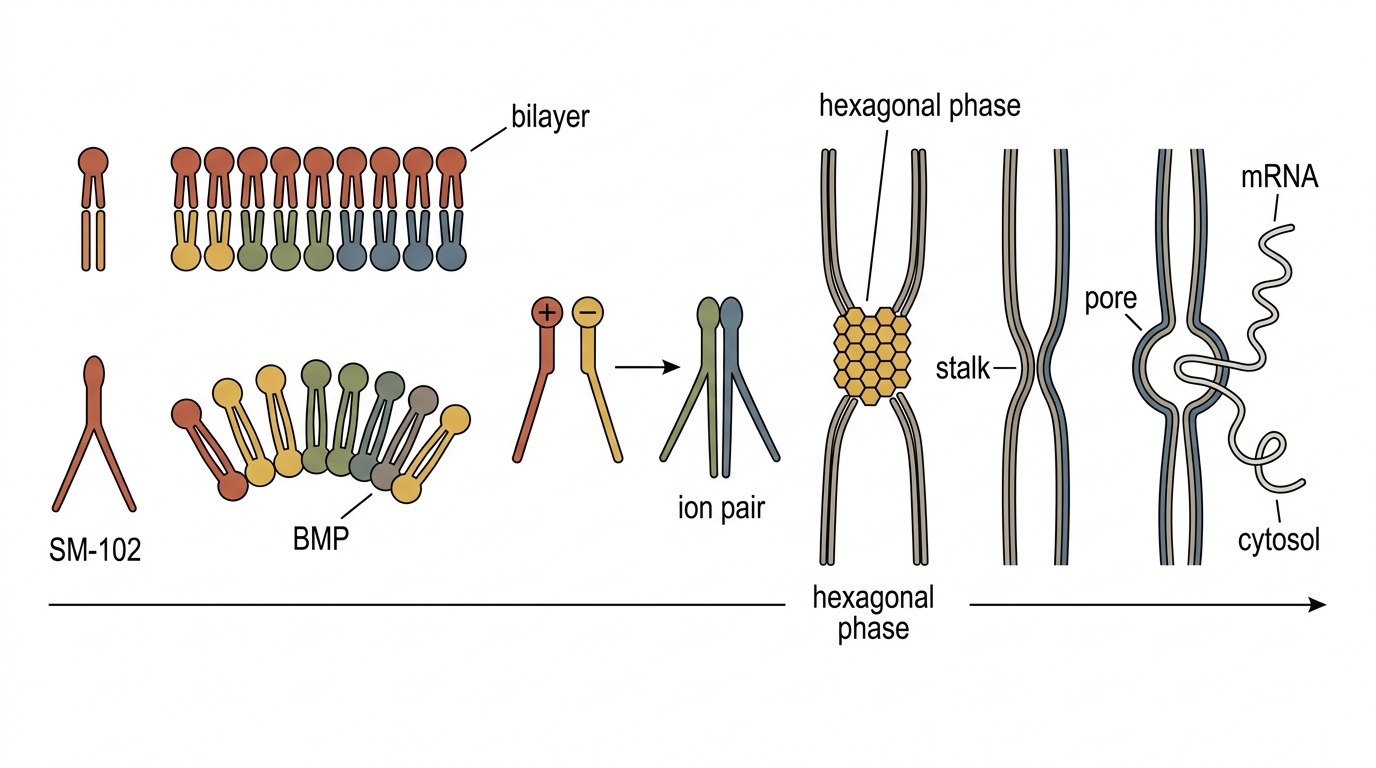
세포막을 이루는 인지질을 옆에서 보면 대체로 원기둥이다. 머리와 꼬리의 굵기가 엇비슷하다. 원기둥을 바닥에 촘촘히 세우면 평평한 판이 된다. 막이 평평한 이유가 그것이다.
그런데 머리는 작고 꼬리는 굵은 지질도 있다. 옆에서 보면 원뿔이다.
원뿔을 촘촘히 세우면 평평해지지 않는다. 저절로 안쪽으로 휜다. 아이스크림 콘을 여러 개 붙여 세워 보면 한 줄이 둥글게 말리는 것과 같다.
후기 엔도솜의 안쪽 면에는 BMP라는 지질이 유난히 많다. 음전하를 띠고 있고, 후기 엔도솜에만 많다. 초기 엔도솜에는 거의 없다. 이 지질이 이 장면의 두 번째 주인공이다.
양전하를 띤 SM-102 하나와 음전하를 띤 BMP 하나가 만나면 머리끼리 전하를 상쇄하며 달라붙는다. 머리 둘이 붙어 하나가 되고, 꼬리는 넷이 된다.
작은 머리, 굵은 꼬리. 원뿔이다.
원뿔이 충분히 많이 생긴 자리에서 막은 더 이상 평평할 수 없게 된다. 판이 꺾인다. 지질들이 육각형으로 다시 늘어선다. 이것을 헥사고날 II 위상이라고 부른다.
그 자리에서 두 막이 하나로 이어진다. 목이 생기고, 목이 벌어지고, 구멍이 뚫린다.
이제 겉보기 pKa가 왜 6.68이 아니라 6.4여야 했는지가 분명해진다.
필요한 것은 양전하가 아니었다. BMP가 있는 자리에서의 양전하였다.
BMP는 후기 엔도솜에 있다. 후기 엔도솜의 pH는 5.5 근처다. 6.68에서 켜진다는 것은 BMP가 아직 없는 초기 엔도솜에서 켜진다는 뜻이고, 그때 SM-102가 붙잡을 수 있는 것은 아무 지질이나였다. 원뿔이 만들어지지 않는다. 막은 휘지 않는다.
열쇠를 복도에서 꺼냈다는 말이 그 뜻이었다.
다른 설명도 있다. 양성자 스펀지 가설이라고 부른다.
이온화 지질이 양성자를 계속 받아 삼키면 펌프는 더 많은 양성자를 밀어 넣어야 한다. 양성자를 따라 염소 이온이 들어오고, 이온이 늘어나면 삼투압 때문에 물이 밀려든다. 엔도솜이 부풀다가 터진다.
어느 쪽이 실제로 일어나는 일인지는 아직 정리되지 않았다. 둘 다 조금씩 일어난다는 것이 지금의 대체적인 생각이다. 폴이 읽은 논문들도 그렇게 적혀 있었다. 확실한 것은 산성화가 방아쇠라는 것뿐이다.
어느 쪽이든 결과는 같다.
mRNA가 세포질로 쏟아진다.
리보솜이 기다리고 있다.
6 — 백 개 중 하나
그런데 이 장면에는 폴이 논문에서 읽고도 한참 믿지 못한 숫자가 하나 있다.
세포 안으로 들어간 mRNA 가운데 실제로 세포질까지 도달하는 것은 1에서 2퍼센트다.
오타가 아니다. 지금 세상에서 가장 잘 만들어진 지질 나노입자가 그렇다. 백 가닥이 엔도솜에 들어가면 한두 가닥이 나온다. 나머지 아흔여덟은 리소솜에서 잘린다.
처음 읽었을 때 폴은 그것이 실패한 실험의 수치인 줄 알았다. 아니었다. 성공한 실험의 수치였다.
왜 그래도 되는지는 세어 보면 보인다.
0.5밀리리터 안에 든 입자는 조 단위다. 그중 근육에 남아 수지상세포에 삼켜지는 것이 일부. 그중 재활용 엔도솜으로 되나가지 않는 것이 삼분의 일. 그중 엔도솜을 뚫고 나오는 것이 백에 하나.
그래도 남는다. 세포 하나 안에 mRNA 수백 가닥이면 충분하다. mRNA 한 가닥은 분해되기 전까지 같은 단백질을 수천 개 찍어낸다.
낭비가 심한 설계다. 그런데 그 낭비를 감당할 만큼 처음의 숫자가 크다. 나노의학은 정확해서 되는 것이 아니라 많아서 되는 쪽에 가깝다.
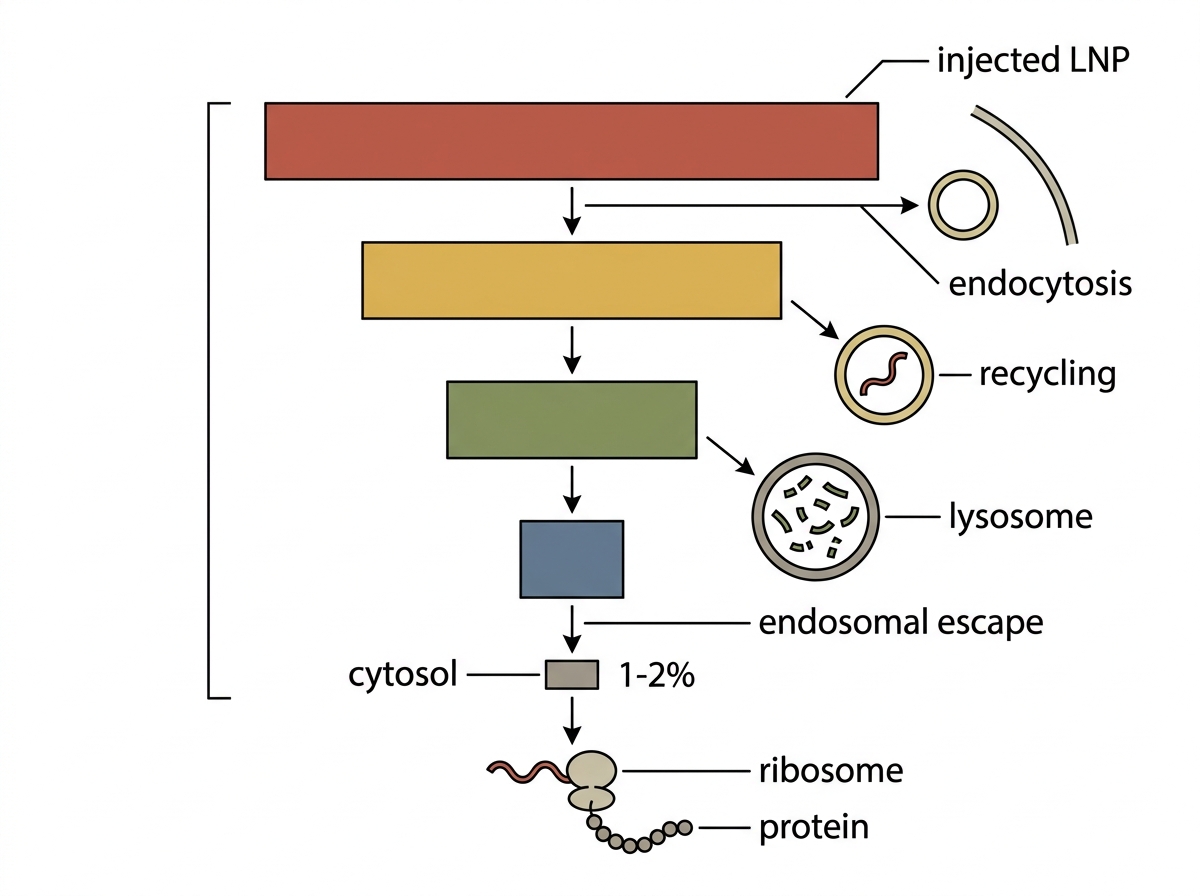
폴이 화면에서 본 빨간 점들은 그러니까 살아남은 1퍼센트였다.
나머지는 그 순간에도 리소솜 안에서 조각나고 있었다.
그런데 그 1퍼센트면 됐다. 다섯 달이 그 한 줄로 좁혀져 있었다.
7 — 전화
폴은 그날 밤 늦게 로지에게 전화했다. 아니 로지에게 전화를 할 수는 없으니, 로지를 돌봐주던 사람에게 전화를 해서 로지가 어떻냐고 물었다.
"오늘도 밥 잘 먹었고, 산책도 했어요. 발이 좀 절더라고요."
"알겠습니다. 고맙습니다."
전화를 끊고 나서 폴은 잠시 앉아 있었다. 실험실에서 형광 이미지를 보며 흥분했던 것이 식으면서, 로지의 뒷다리가 아직 아프다는 현실이 다시 느껴졌다.
아직 멀었다. LNP가 작동한다는 걸 세포 수준에서 확인한 것뿐이었다. 실제로 로지한테 투여해서 면역 반응이 생기는지, 종양이 줄어드는지는 또 다른 문제였다.
그래도 오늘 하나를 넘었다.
폴은 다시 컴퓨터를 열었다.
제13장 — 투여
1 — 개턴
퀸즐랜드 개턴.
브리즈번에서 차로 한 시간 정도 서쪽으로 가면 나오는 작은 도시였다. UQ 수의학부 개턴 캠퍼스가 있는 곳이었다. 폴은 로지와 함께 거기까지 갔다.
라첼이 처치실에서 기다리고 있었다. 조용하고 차분한 사람이었다. 주사기를 준비하면서 폴에게 말했다.
"로지 괜찮을 거예요. 걱정 마세요."
폴은 걱정하지 않으려 했다.
로지가 처치대 위에 올랐다. 라첼이 왼쪽 뒷다리 넓적다리 근육에 주사를 놓았다. 0.5밀리리터. 투명한 용액이 로지 몸 안으로 들어갔다.
로지는 꼼짝도 하지 않았다.
2 — 0.5밀리리터
폴이 처치실 밖 복도에서 기다리는 동안, 로지 몸 안에서는 눈에 보이지 않는 일들이 시작되고 있었다.
주사 후 0초. 91나노미터짜리 구체 수억 개가 로지 대퇴사두근 근육 간질 공간으로 퍼졌다. 각각의 구체는 PEG-DMG 수화층이 가장 바깥을 감싸고, 그 안에 DSPC와 콜레스테롤로 이루어진 구조층이 있었다. 그 안에 SM-102 이온화 지질이, 그리고 가장 중심에 mRNA가 있었다.
조직 상주 수지상세포가 이것들을 감지했다. 수상돌기를 뻗어 LNP와 접촉했다. 클라트린 단백질이 모여들었다. 세포막이 오목하게 들어가면서 LNP를 감쌌다. 소포가 형성됐다.
세포 안으로 들어갔다.
초기 엔도솜이 됐다. V형 양성자 펌프가 수소 이온을 밀어 넣었다. pH가 내려갔다.
7.2에서 6.8로.
6.8에서 6.41로.
SM-102가 양전하를 띠기 시작했다. 막이 불안정해졌다. 팽창했다. 터졌다.
mRNA 가닥들이 세포질로 쏟아졌다.
3 — 나노의 세계로
그 순간부터 로지의 몸 안에서 전쟁이 시작됐다.
폴은 그걸 볼 수 없었다. 아무도 볼 수 없었다. 그러나 그건 분명히 일어나고 있었다.
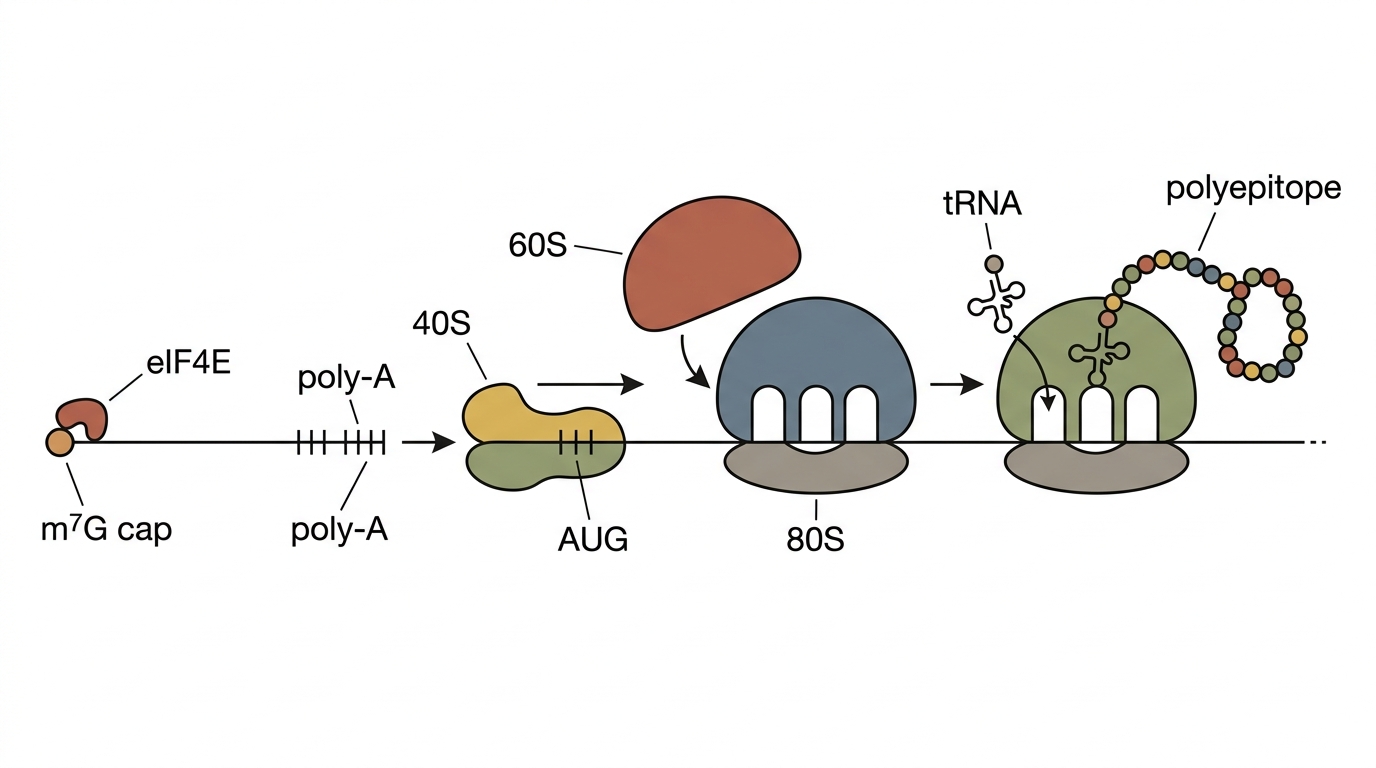
세포질에서 리보솜들이 기다리고 있었다. 각각의 리보솜은 40S와 60S 소단위로 이루어진 분자 기계였다. mRNA를 읽어서 아미노산을 이어 붙여 단백질을 만드는 것이 그들의 임무였다.
탈출한 mRNA의 5' 말단에 m7G 캡 구조가 있었다. eIF4E가 그것을 인식했다. 번역 개시 복합체가 조립됐다. 43S 전개시 복합체가 mRNA를 따라 스캔했다. Kozak 서열에서 멈추었다. AUG 개시 코돈이었다. 60S 대단위가 결합했다.
80S 리보솜 완성.
번역이 시작됐다. 초당 다섯 개 아미노산. 코돈 하나가 읽힐 때마다 tRNA가 아미노산을 들고 왔다. 펩타이드 결합이 형성됐다. 사슬이 길어졌다.
Ser-Val-Asp-Gly-Gln-Val-Tyr-Ile-Pro.
SVDGQVYIP.
그것이 KIT D816V로부터 온 아홉 개 아미노산의 서열이었다.
지금 본 것은 요약이다. 실제로는 열일곱 단계가 있었고, 단계마다 이름이 붙은 분자가 있었다.
이제 그 열일곱 단계를 하나씩 본다. 시계는 주사 순간에 맞춰져 있다.
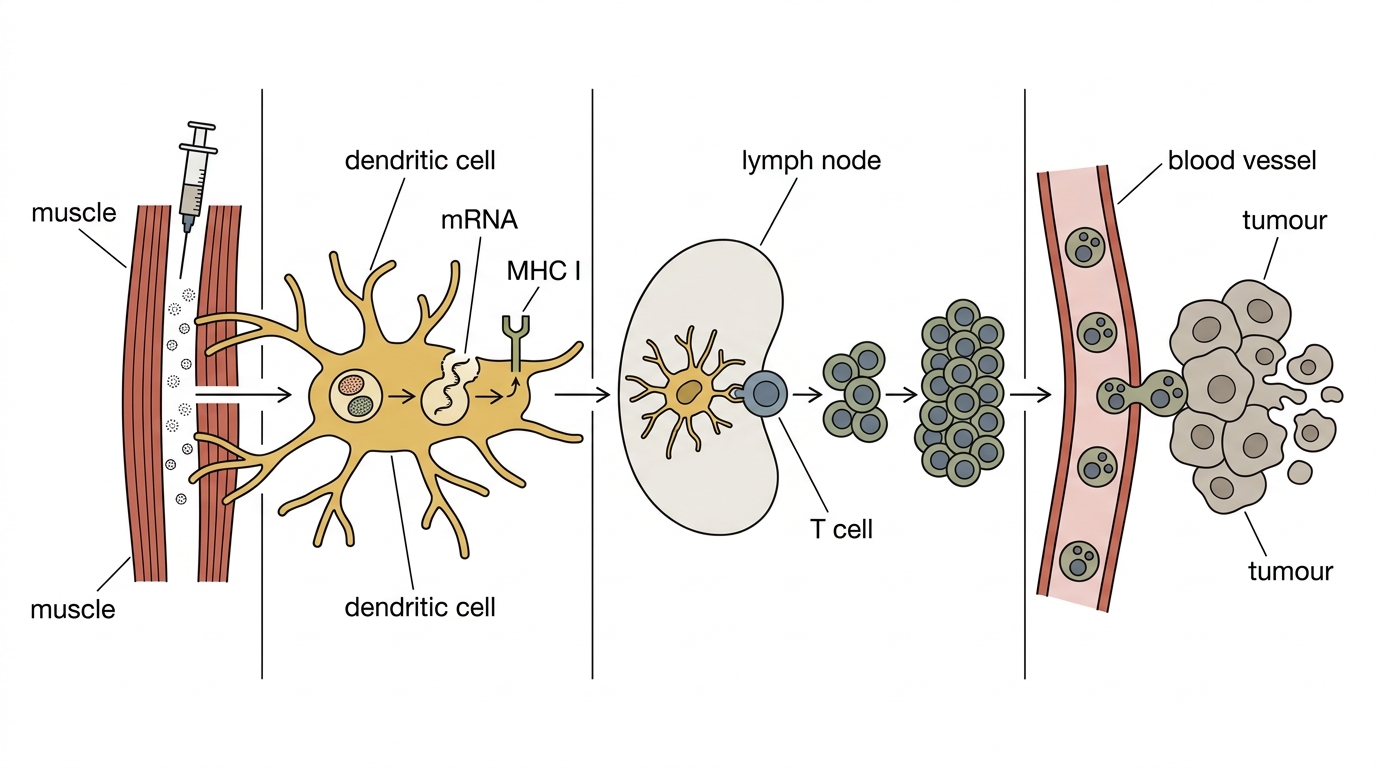
4 — 1단계: 근육 간질 속의 첫 착지 — 주사 후 0초
91나노미터짜리 구체들이 로지 근육 조직 안으로 퍼져나가는 동안, 그 구체들의 구조는 정밀하게 설계된 것이었다.
근육 간질 공간이란 근섬유와 근섬유 사이의 좁은 틈이다. 세포도 혈관도 아닌, 조직액이 채워진 사이 공간. 주사기로 밀어 넣은 액체가 처음 놓이는 자리가 거기다.
주사기 안에 있던 입자는 조 단위였다. 그중 근육 간질로 퍼져 나간 것이 수억 개다. 나머지는 그 자리에 남거나 림프로 흘러갔다.
이 자리를 고른 데는 이유가 있었다. 정맥으로 넣으면 입자의 대부분이 간으로 쓸려 간다. 근육에 넣으면 대부분이 그 자리에 남고, 그 자리에는 이 백신이 만나야 할 세포가 산다.
가장 바깥층은 PEG-DMG로 이루어진 수화층이었다. 폴리에틸렌글리콜 사슬들이 물 분자를 붙잡아서, 면역계의 첫 번째 감시자들이 이것을 외부 침입자로 인식하지 못하게 했다. 마치 잠수함이 소음을 흡수하는 외피를 두르듯.
그 안쪽의 DSPC 인지질과 콜레스테롤이 구조적 안정성을 담보했다. 너무 딱딱하지도, 너무 물렁하지도 않은 막의 탄성.
그리고 가장 안쪽에서 SM-102 이온화 지질이 음전하의 mRNA를 감싸 안고 있었다. pH 6.41이 될 때까지, 이 지질은 조용히 기다렸다.
5 — 2단계: 수지상세포와의 만남 — 주사 후 수 분
로지 대퇴부 근육 조직에는 수백 개의 수지상세포가 분포해 있었다. 이 세포들이 문어처럼 긴 수상돌기를 뻗어 간질 공간을 끊임없이 탐색하고 있었다.
수지상세포는 이름 그대로 나뭇가지처럼 생겼다. 몸통은 작고, 거기서 뻗어 나온 돌기가 사방으로 길게 자란다. 그 돌기가 쉬지 않고 주변을 훑는다.
이 세포가 하루에 훑는 조직액의 부피는 제 몸 부피의 수백 배다. 무엇이든 걸리면 삼킨다. 삼킨 것을 조각내 표면에 내걸고, 그것을 보여줄 상대를 찾아 림프절로 간다.
면역계의 정찰병이자 전령이다. 백신이 노리는 것은 오직 이 세포다.
LNP가 수지상세포의 수상돌기에 접촉했다.
클라트린 단백질이 반응했다. 트리스켈리온 구조의 클라트린 분자들이 모여서 격자를 이루었다. 세포막이 안쪽으로 당겨졌다. 소포가 형성됐다.
클라트린 매개 세포내이입. 완성.
LNP가 초기 엔도솜 안에 들어갔다. 미세소관을 따라 이동하기 시작했다. 그 이동 과정에서 엔도솜 안의 V형 양성자 펌프가 ATP를 소비하며 수소 이온을 내부로 밀어 넣었다.
소포는 세포 안을 표류하지 않는다. 미세소관이라는 레일이 깔려 있고, 모터 단백질이 소포를 붙잡고 그 레일 위를 걷는다. 목적지는 세포 중심부다.
가는 동안 산성화가 진행된다. 레일 위를 가는 시간이 곧 시계다.
pH가 변하기 시작했다.
6 — 3단계: 엔도솜의 산성화와 분자의 각성 — 주사 후 30~45분
pH 6.41에 도달했을 때 — 폴이 고쳐 만든 입자의 겉보기 pKa에서 — SM-102 분자들이 하나씩 양성자를 포획하기 시작했다. 3급 아민 작용기가 양성자화되며 양전하를 띠게 됐다.
양전하를 띠게 된 SM-102가 음전하를 띤 엔도솜 내막 지질을 끌어당기기 시작했다.
정전기적 인력. 두 막이 접촉했다. 지질들이 뒤섞이기 시작했다. 헥사고날 II 위상 구조가 형성됐다. 막에 결함이 생겼다. 결함이 확장됐다.
pH 6.2.
엔도솜 안의 삼투압이 변했다. 물 분자들이 밀려들었다. 엔도솜이 부풀었다.
그리고 터졌다.
mRNA 가닥들이 세포질로 방출됐다.
여기서 다시 기억해야 할 숫자가 있다. 엔도솜에 들어간 mRNA 가운데 이렇게 세포질까지 나오는 것은 백에 하나둘이다. 로지의 수지상세포 안에서도 다르지 않았다. 나머지는 리소솜으로 실려 갔다.
그래도 남은 것이 충분했다. 처음의 숫자가 컸기 때문이다.
7 — 4단계: 리보솜의 작업장 — 번역의 시작
리보솜들이 mRNA를 읽기 시작했다.
번역 개시 인자 eIF4E가 m7G 캡을 인식했다. 43S 전개시 복합체가 조립됐다. mRNA를 따라 스캔했다. Kozak 서열에서 AUG를 찾았다. 60S 대단위가 결합했다.
이 문장을 낱말별로 풀면 이렇다.
mRNA의 앞머리에는 m7G 캡이라는 마개가 씌워져 있다. 이 마개는 이것은 세포가 인정한 정상 mRNA다라는 표시다. 마개가 없는 RNA는 세포가 침입자로 보고 공격한다.
eIF4E는 그 마개를 알아보는 단백질이다. 마개를 잡으면 다른 개시 인자들이 줄줄이 따라붙고, 작은 리보솜 소단위인 40S가 그 위에 올라탄다. 이 덩어리가 43S 전개시 복합체다.
올라탄 복합체는 mRNA를 앞에서부터 훑으며 나아간다. 스캐닝이라고 한다. 시작 지점을 찾는 것이다.
아무 AUG에서나 멈추지 않는다. AUG 앞뒤 몇 글자가 정해진 모양일 때만 멈춘다. 그 모양을 코자크 서열이라고 한다. 문장의 첫 글자를 대문자로 쓰는 규칙과 비슷하다 — 여기가 시작이라는 표시다.
멈추면 큰 소단위인 60S가 위에 얹힌다. 40S와 60S가 맞물려 80S가 된다. 두 짝이 맞물려야 기계가 돌아간다.
80S 개시 복합체 완성.
초당 다섯 개 아미노산. P 사이트에서 펩타이드 결합이 형성됐다. 리보솜이 한 코돈씩 전진했다.
리보솜 안에는 자리가 셋 있다. A와 P와 E.
새 tRNA가 A로 들어오고, 사슬이 P에서 이어지고, 빈 tRNA가 E로 빠져나간다. 들어오고, 잇고, 나간다. 이 세 박자가 초당 다섯 번 반복된다.
초당 다섯 개. 아미노산 백 개짜리 사슬 하나에 이십 초쯤 걸린다는 뜻이다.
IgE 신호 펩타이드 서열이 합성됐다. 신호 인식 입자(SRP)가 리보솜을 소포체 막으로 안내했다. 번역이 재개됐다. 폴리에피토프 사슬이 합성되면서 동시에 소포체 내강으로 밀려 들어갔다.
여기서 8장의 설계가 작동하기 시작한다.
폴이 서열 맨 앞에 붙여 둔 IgE 신호 펩타이드는 주소다. 사슬의 첫 스무 개쯤이 합성되어 리보솜 밖으로 나오면, SRP라는 단백질이 그것을 읽는다. 주소가 맞으면 SRP는 리보솜을 통째로 붙잡아 소포체 막으로 끌고 간다.
끌려가는 동안 번역은 잠시 멈춘다. 소포체 막에 도착해 자리를 잡으면 다시 시작된다. 그때부터 만들어지는 사슬은 세포질이 아니라 소포체 안쪽으로 밀려 들어간다.
주소 한 줄이 단백질이 태어날 장소를 바꾼 것이다.
8 — 5단계: 소포체 안의 품질 관리
소포체 내강에서 샤페론들이 달려들었다.
BiP가 가장 먼저 결합했다. 칼넥신과 칼레티쿨린도 합류했다. 폴리에피토프의 C-말단에 있는 MITD 서열이 역전위를 유도했다. 폴리에피토프가 다시 세포질로 나왔다.
이 대목은 언뜻 이상하게 들린다. 애써 소포체 안으로 밀어 넣은 사슬을 왜 다시 세포질로 빼내는가.
그것이 설계였다.
소포체 안은 접히지 못한 단백질을 감시하는 곳이다. BiP와 칼넥신과 칼레티쿨린이 그 감시자들이다. 제대로 접히지 못한 것을 붙잡아 두었다가, 가망이 없으면 세포질로 되돌려 보내 폐기시킨다. 이 되돌리기를 역전위라고 한다.
폴리에피토프는 애초에 제대로 접힐 수 있는 모양이 아니었다. 서로 상관없는 조각 셋을 GPGPG 링커로 이어 붙인 사슬이었으니까.
그리고 C-말단에 붙여 둔 MITD가 그 되돌리기를 재촉했다.
폐기가 목적이었다. 정확히 말하면, 폐기 과정에서 나오는 조각이 목적이었다.
26S 프로테아솜이 기다리고 있었다.
19S 조절 입자가 폴리에피토프를 풀어헤치며 20S 코어로 밀어 넣었다. β1, β2, β5 서브유닛의 세 가지 프로테아제 활성이 폴리에피토프를 8~12개 아미노산 길이의 펩타이드 조각들로 절단했다.
프로테아솜은 통이다. 위아래에 뚜껑이 있고 가운데가 원통이다.
뚜껑인 19S가 사슬을 붙잡아 실처럼 풀어서 통 안으로 밀어 넣는다. 통인 20S의 안쪽 벽에는 가위 역할을 하는 자리가 여러 개 박혀 있다. 사슬이 지나가면 잘린다.
나오는 조각의 길이는 대개 여덟에서 열두 개 아미노산이다. 이 길이는 우연이 아니다. MHC I의 홈에 들어맞는 길이가 그 정도다. 세포는 처음부터 내걸 작정으로 자른다.
세포는 자기 단백질을 늘 이렇게 잘라 표면에 내건다. 건강한 세포는 정상 조각을 내걸고, 감염되거나 변이한 세포는 비정상 조각을 내건다.
표면에 걸린 것을 보면 안에서 무엇이 만들어지고 있는지 알 수 있다. 면역계는 그 원리로 세포 내부를 감시한다. 들여다보지 않고도.
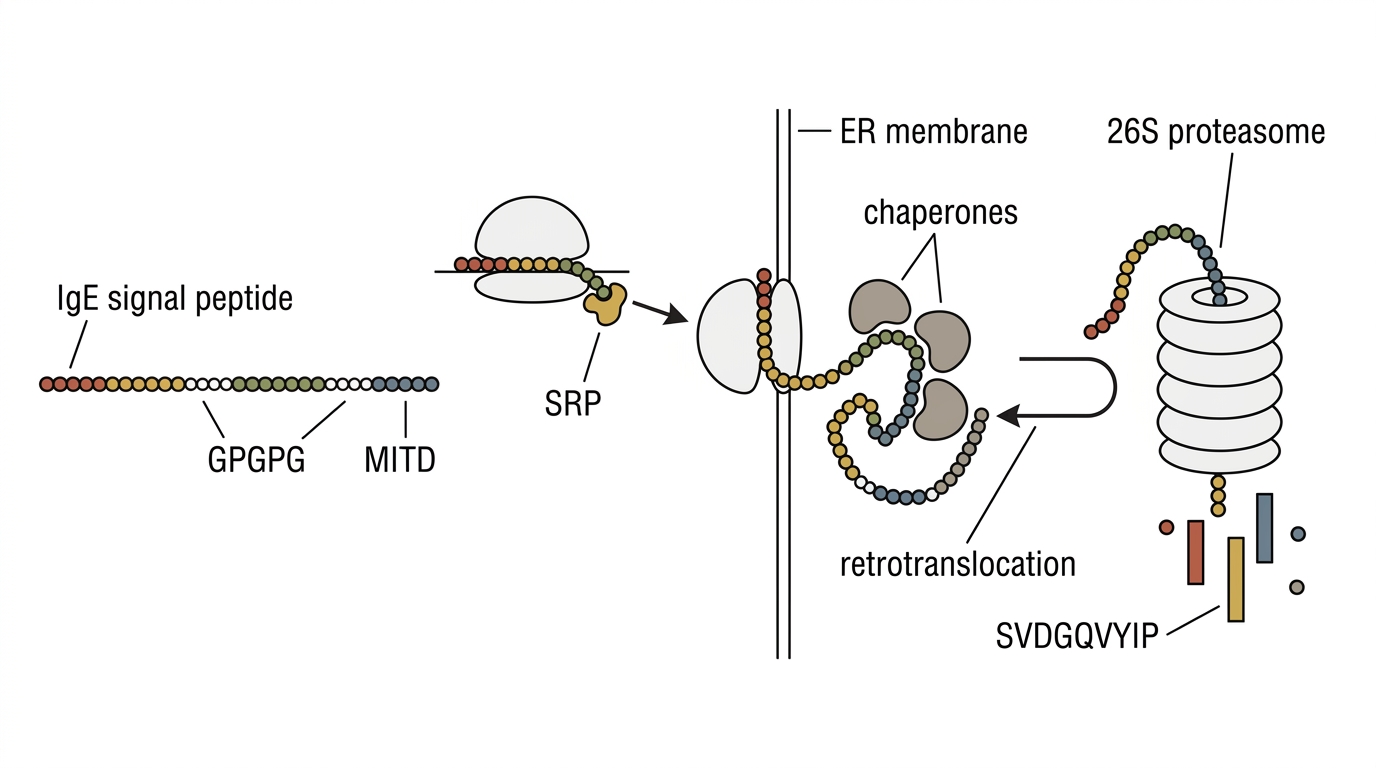
그 중에 SVDGQVYIP가 있었다.
아홉 개 아미노산. KIT 816번 위치의 발린을 포함하는, 종양 세포만이 표면에 내거는 그 서열.
9 — 6단계: TAP 펌프와 MHC I의 장착
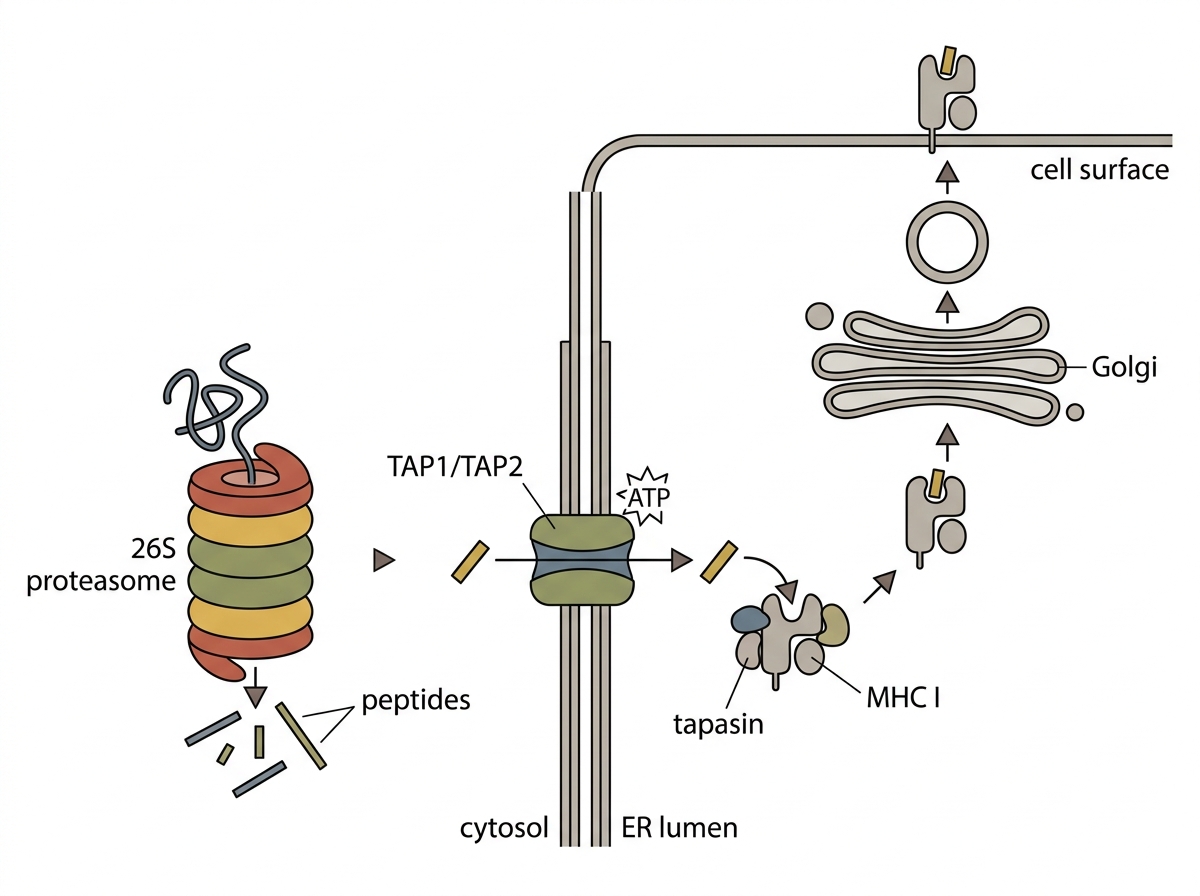
프로테아솜에서 나온 SVDGQVYIP가 세포질을 표류하기 시작했다. ER 막에 박혀 있는 TAP1/TAP2 이형이합체가 이미 대기하고 있었다.
TAP가 ATP를 가수분해하며 SVDGQVYIP를 ER 내강으로 이동시켰다.
ER 내강에서는 펩타이드 로딩 복합체(PLC)가 기다리고 있었다. TAP1/TAP2, tapasin, ERp57, 칼레티쿨린, 그리고 MHC 클래스 I 분자. Tapasin이 MHC I 분자를 TAP 가까이에 붙들어 두었다. 빈 MHC I 분자의 결합 홈이 펩타이드를 기다리고 있었다.
펩타이드 로딩 복합체는 조립 라인이다.
빈 MHC I 분자는 불안정하다. 홈이 비어 있으면 모양이 무너진다. 그래서 tapasin이 그것을 붙들고 TAP 옆에 세워 둔다. 홈을 벌린 채로.
TAP는 문이다. 세포질에 떠다니는 조각을 소포체 안으로 밀어 넣는다. 밀어 넣으려면 ATP를 쓴다. 조각은 저절로 막을 통과하지 못한다.
조립 라인 앞에 부품이 도착하는 것이다.
SVDGQVYIP가 TAP에서 방출되어 PLC 안으로 들어왔다.
SVDGQVYIP의 N-말단과 C-말단이 MHC I 결합 홈의 양 끝에 닻을 내렸다. Tyr(Y) 잔기가 B 포켓에 맞아 들어갔다. Pro(P) C-말단이 F 포켓에 고정됐다.
아무 조각이나 홈에 들어가지는 않는다.
MHC I의 홈에는 우묵한 곳이 여섯 군데 있다. 그중 두 곳 — B 포켓과 F 포켓 — 이 특히 깊다. 조각의 정해진 자리에 있는 아미노산이 그 두 구멍에 열쇠처럼 맞아야 한다. 그 자리를 앵커 잔기라고 한다.
8장에서 NetMHCpan이 예측한 것이 바로 이것이었다. 수천 개의 후보 가운데 이 아홉 글자가 뽑힌 이유는, 이 아홉 글자의 앞쪽 앵커와 마지막 글자가 로지의 DLA 홈에 맞았기 때문이다.
화면 위의 예측이 지금 로지의 세포 안에서 실제로 맞아 들어갔다.
홈이 닫히면 MHC I은 안정해진다. 이제 이 분자는 세포 표면으로 갈 자격을 얻는다. 빈 채로는 가지 못한다.
MHC I 분자가 닫혔다. α1과 α2 헬릭스가 펩타이드 위로 조여들었다.
pMHC I 복합체 완성.
10 — 7단계: 수지상세포의 성숙과 림프절로의 여정
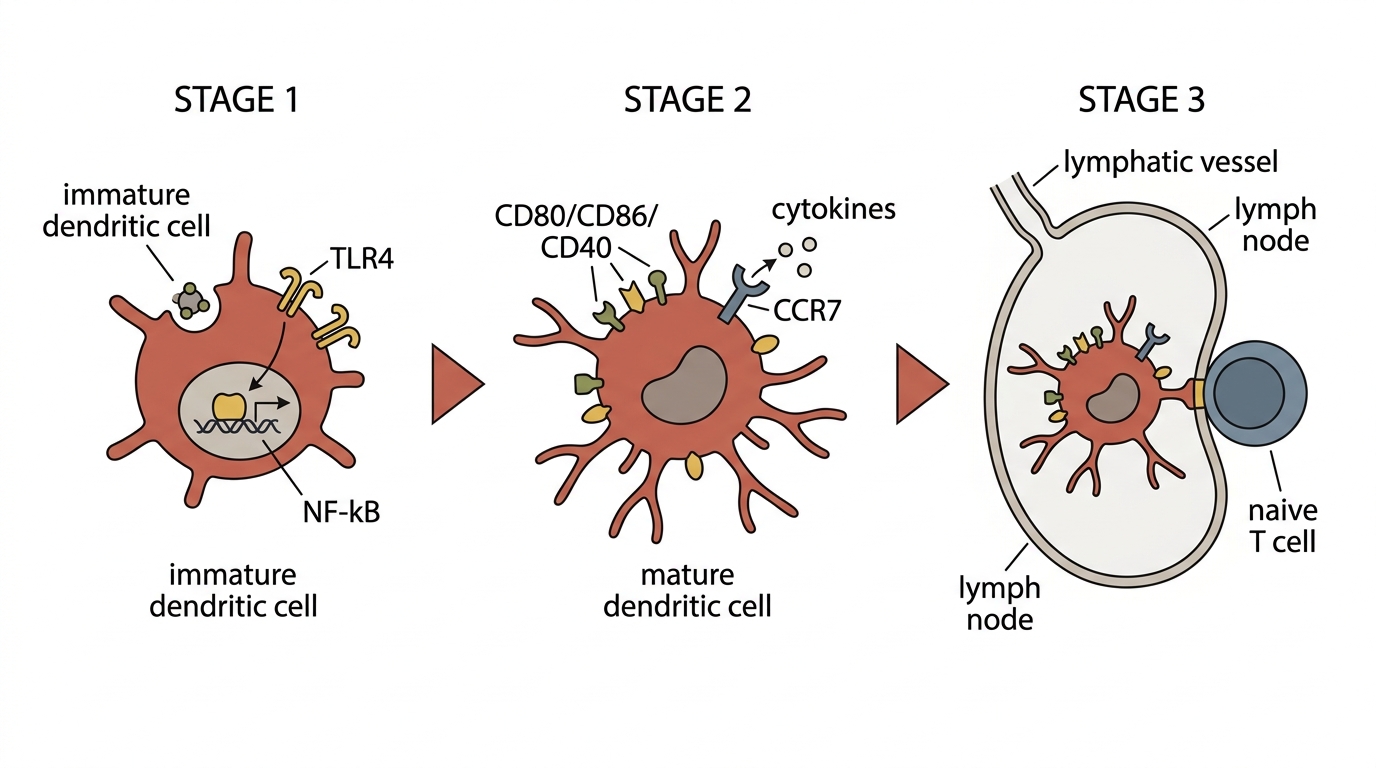
pMHC I 복합체는 ER → 골지체 → 분비 소포의 경로를 거쳐 수지상세포 표면으로 이동했다.
LNP의 SM-102 이온화 지질이 TLR4와 STING 경로를 약하게 활성화했다. 이 신호가 NF-κB를 활성화했다. 수지상세포가 성숙 과정에 들어갔다.
여기서 한 가지가 더 필요했다.
수지상세포가 항원을 삼켰다고 해서 곧바로 움직이지는 않는다. 삼키기만 한 상태로 T세포를 만나면 오히려 반대 결과가 나온다 — T세포는 이건 정상이다라고 배우고 잠잠해진다. 면역 관용이라고 한다.
그래서 백신에는 위험 신호가 함께 들어 있어야 한다. 그 역할을 하는 물질을 보조제라고 부른다.
mRNA 백신에는 따로 넣은 보조제가 없다. 이온화 지질 자체와 mRNA 자체가 그 일을 한다. 세포는 이 둘을 어느 정도 이물질로 느끼고, 그 느낌이 곧 위험 신호가 된다.
삼킨 것과 위험 신호가 함께 왔을 때만 수지상세포는 성숙한다. 백신을 맞은 자리가 붓고 뻐근한 것도 같은 이유다. 그 불편함이 곧 신호다.
CD80, CD86, CD40이 상향 조절됐다. TNF-α, IL-12, IL-6가 분비되기 시작했다. CCR7 케모카인 수용체가 상향 조절됐다. 이것이 림프절을 향한 나침반이었다.
성숙한다는 것은 표면에 무엇을 내거느냐가 바뀐다는 뜻이다.
CD80과 CD86은 두 번째 악수다. T세포는 첫 번째 악수 — TCR과 pMHC — 만으로는 켜지지 않는다. 두 번째 악수가 없으면 오히려 꺼진다. 두 신호가 함께 와야 T세포가 움직인다.
CCR7은 나침반이다. 림프절이 뿜는 신호 물질을 감지하는 수용체로, 이것이 표면에 깔리면 세포는 그 냄새가 짙어지는 쪽으로 기어간다.
그리고 세포는 삼키기를 멈춘다. 이제 할 일은 모으는 것이 아니라 보여주는 것이다.
성숙한 수지상세포가 근육 조직을 떠났다.
MMP-2, MMP-9를 분비해서 세포외기질을 분해했다. 아메바 운동으로 조직을 헤치고 나아가 림프 모세관으로 진입했다.
조직은 빈 공간이 아니다. 콜라겐 그물이 빽빽하게 얽혀 있다. 세포가 지나가려면 그물을 잘라야 한다. MMP가 그 가위다.
자르고, 밀고, 몸의 모양을 바꿔 가며 기어간다. 정해진 길은 없다.
림프 흐름을 따라, 서혜부 림프절을 향해.
11 — 8단계: 림프절 — 나이브 T세포들이 기다리는 곳
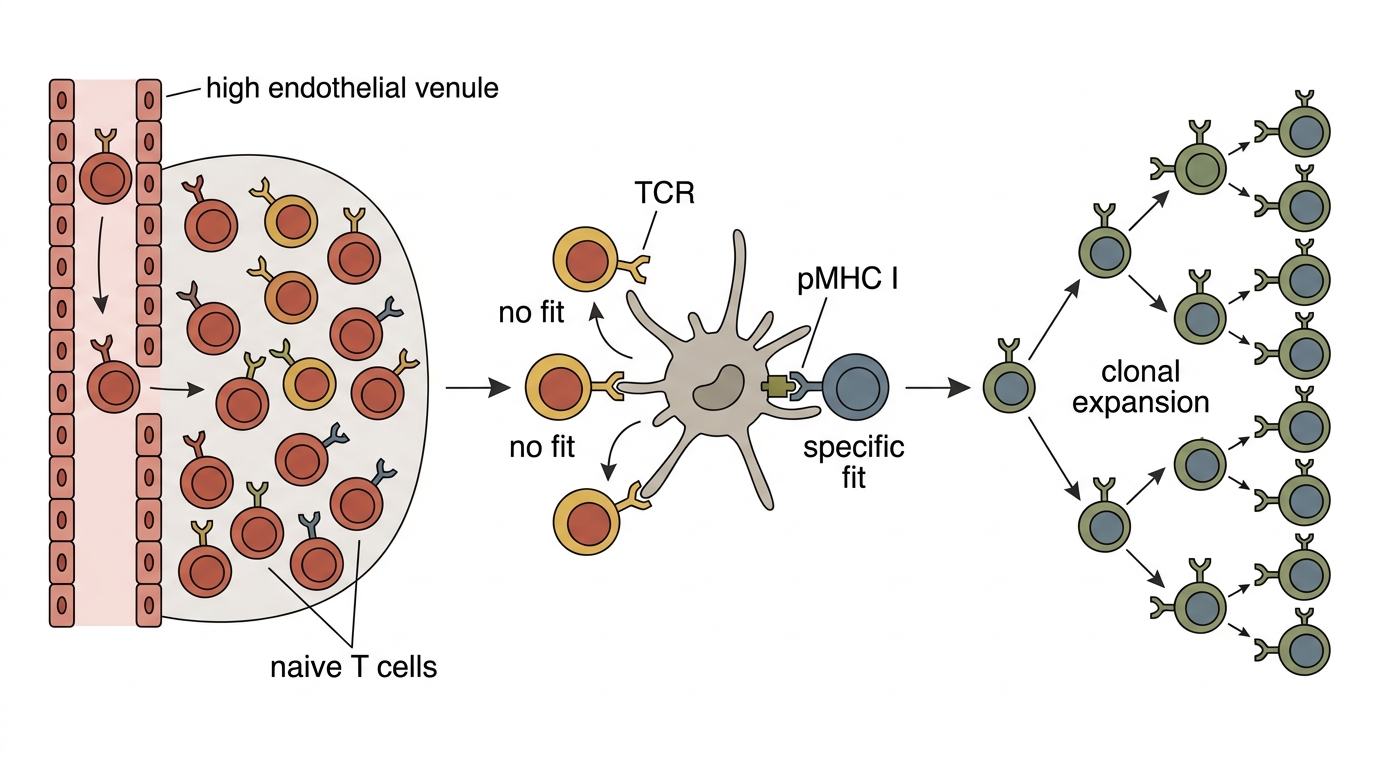
림프절의 부피질에는 나이브 T세포들이 빽빽하게 채워져 있었다. 고내피 세정맥을 통해 혈류에서 들어온 T세포들이었다. 각각은 V(D)J 재조합을 통해 생성된 고유한 TCR을 가지고 있었다. 이론적으로 TCR 레퍼토리는 10¹⁸ 가지 이상이었다.
나이브 T세포란 아직 한 번도 제 짝을 만나지 못한 T세포다. 흉선에서 검사를 통과한 뒤, 평생 림프절을 돌며 그 짝을 기다린다.
짝은 하나뿐이다. T세포 하나는 딱 한 가지 모양의 조각만 알아본다. 그 모양은 태어날 때 무작위로 정해진다.
10의 18제곱이라는 수는 그 무작위 조합의 가짓수다. 그런데 로지 몸 안의 T세포는 다 합쳐도 수십억 개다.
가능한 종류가 실제 개수보다 억 배쯤 많다. 그러니까 몸은 모든 모양을 다 갖고 있지 않다. 아무 조각이나 가져와도 그것을 알아보는 T세포가 있을 확률이 높을 뿐이다.
백신이 겨냥한 아홉 글자를 알아보는 T세포가 로지 몸 안에 있는가. 그 물음의 답을 지금 확인하는 중이었다.
성숙한 수지상세포가 부피질에 도착했다.
수상돌기를 뻗었다. T세포들이 지나쳤다.
하나씩, 하나씩. 밀리초 단위로 접촉하고 이탈했다. 맞지 않았다.
수백만 번의 접촉.
수백만 번의 불일치.
이 만남은 그러나 우연에 맡겨진 것이 아니다.
림프절의 구조 자체가 만남을 위해 만들어져 있다. 그물처럼 얽힌 세포들이 좁은 통로를 내고, T세포는 그 통로를 따라 쉬지 않고 훑고 다닌다. 수지상세포는 통로 한가운데에 자리를 잡고 돌기를 펼친다. 길목을 지키는 것이다.
T세포 하나가 하루에 수천 개의 수지상세포를 스친다. 접촉은 짧다. 몇 초, 길어야 몇 분.
맞지 않으면 떨어진다. 그러니까 이 수백만 번은 낭비가 아니라 검색이다. 도서관에서 책등을 손가락으로 훑어 내려가는 일과 같다.
12 — 9단계: TCR 인식 — 만남의 순간
그리고, 한 T세포가 지나쳤다.
그 T세포의 TCR이 SVDGQVYIP-DLA 복합체와 접촉했다.
접촉이 지속됐다.
TCR의 CDR3 루프가 SVDGQVYIP 펩타이드의 Asp(D), Gln(Q), Tyr(Y) 잔기에 정확하게 맞아 들어갔다. DLA의 α1-α2 구조 도메인이 TCR의 Vα-Vβ 도메인을 감쌌다. 결합 친화도가 Kd 수백 나노몰 수준으로 형성됐다.
결합 친화도 Kd는 붙는 힘이라기보다 붙어 있는 시간에 가깝다. 숫자가 작을수록 오래 붙어 있는다.
수백 나노몰은 항체가 항원을 붙잡는 힘보다 훨씬 약하다. T세포는 원래 약하게 붙는다.
대신 얼마나 오래 붙어 있는지를 본다. 스치고 지나가면 아무 일도 없고, 몇 초 이상 붙어 있으면 신호가 쌓인다. 짧은 접촉을 무시하고 긴 접촉만 세는 구조다.
잘못 켜지는 것을 막는 장치다. 대충 비슷한 것에 반응해 제 몸을 공격하면 안 되니까.
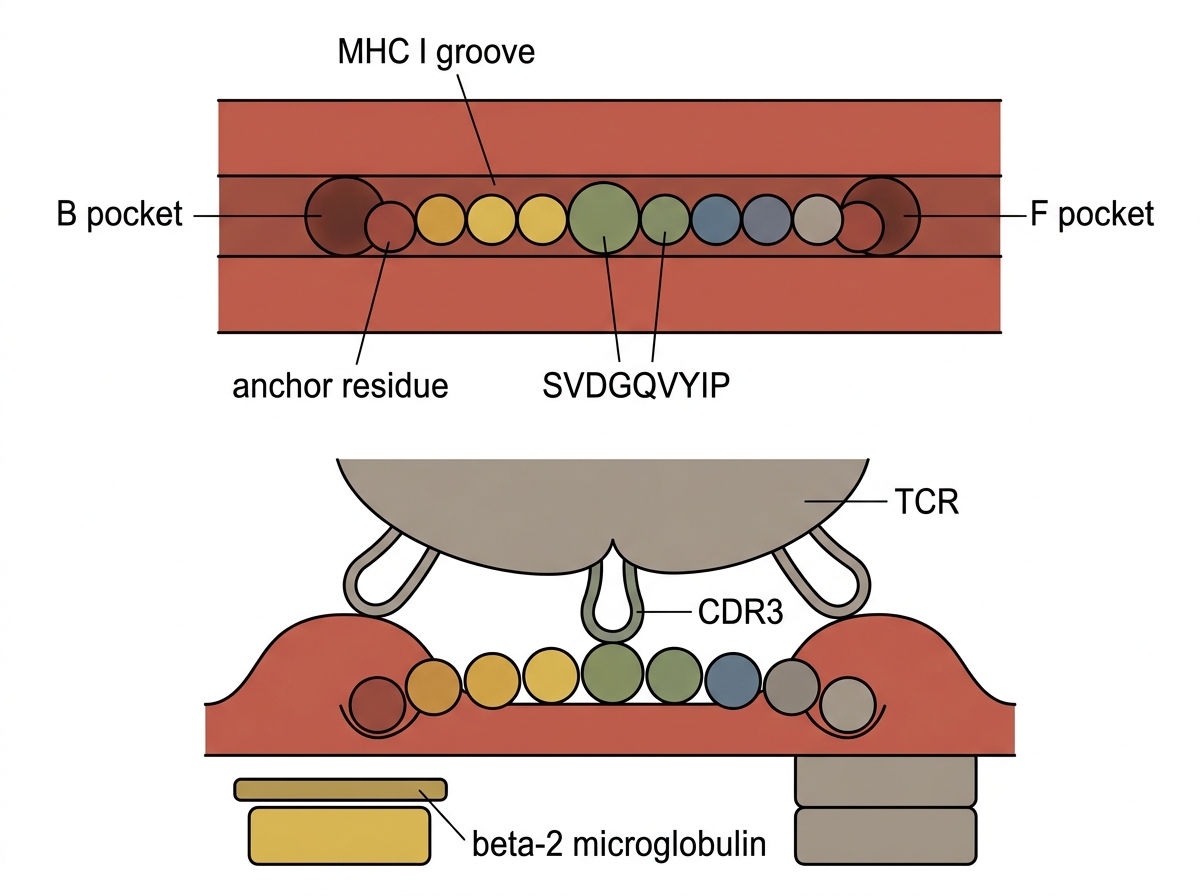
T세포가 멈추었다.
13 — 10단계: 면역 시냅스의 형성
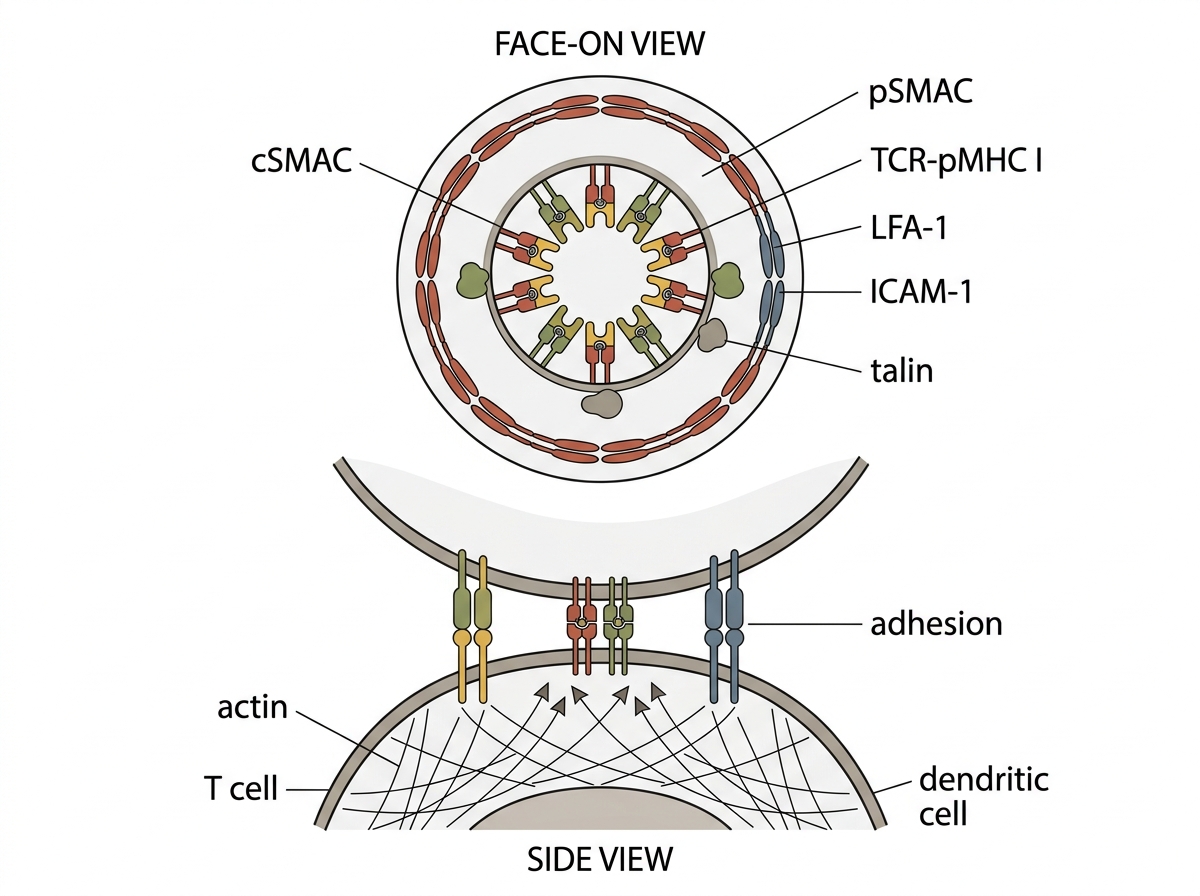
T세포와 수지상세포 사이에서 변화가 시작됐다.
LFA-1이 수지상세포 표면의 ICAM-1에 결합했다. 두 세포가 서로를 향해 당겨졌다. 세포 간 거리가 좁아졌다.
면역 시냅스가 형성되기 시작했다.
접촉 면의 중앙부에 TCR-pMHC I 복합체들이 집결했다. 아크틴 세포골격이 재조직되며 TCR들을 중앙으로 끌어모았다. 이것이 cSMAC이었다.
cSMAC 주변으로 링 형태의 pSMAC이 형성됐다. LFA-1과 ICAM-1, 탈린과 빈쿨린이 이 링을 구성했다. 두 세포막 사이의 공간이 밀폐됐다.
시냅스라는 이름은 신경세포에서 빌려 온 것이다. 두 세포가 아주 가까이 붙어 정보를 주고받는 자리라는 뜻이다.
가운데에 신호를 주고받는 분자들이 모이고, 그 둘레를 접착 분자들이 고리처럼 감싼다. 고리가 안과 밖을 갈라 놓아, 가운데에서 오가는 신호가 새어 나가지 않는다.
과녁 모양이다. 그리고 이 과녁은 몇 분에서 몇 시간 유지된다. 스치는 접촉으로는 만들어지지 않는다.
T세포 안에서 신호 전달이 시작됐다. TCR이 pMHC I에 결합하면서 Lck가 CD3ζ 사슬의 ITAM 티로신을 인산화했다. ZAP-70이 결합해서 활성화됐다. LAT를 인산화했다. PLC-γ1이 PIP₂를 절단했다. IP₃와 DAG가 생성됐다.
줄줄이 나오는 이 이름들은 전부 한 가지 일을 한다. 밖에서 일어난 일을 안으로 전한다.
세포막은 뚫려 있지 않다. TCR이 바깥에서 무언가를 붙잡았다는 사실이 핵까지 가려면, 분자들이 차례로 서로를 건드려 소식을 옮겨야 한다.
옮기는 방법은 대개 인산기 하나를 붙이는 것이다. 인산기가 붙으면 그 단백질의 모양이 바뀌고, 모양이 바뀌면 다음 단백질이 달라붙는다. 도미노다.
도미노를 여러 줄로 세워 둔 데는 이유가 있다. 한 줄이면 실수 한 번에 세포가 켜진다. 여러 줄이 모두 넘어져야 켜지게 해 두면 웬만해서는 잘못 켜지지 않는다.
IP₃가 ER에서 Ca²⁺을 방출시켰다. 칼시뉴린이 NFAT를 탈인산화했다. NFAT가 핵으로 이동했다. DAG가 PKC-θ를 활성화했다. NF-κB가 핵으로 이동했다. Ras-MAPK 경로로 AP-1도 핵으로 이동했다.
세 줄이 나란히 달렸다.
한 줄은 칼슘이다. 소포체에 저장해 둔 칼슘이 쏟아져 나오고, 그것이 NFAT를 풀어 준다.
한 줄은 지질이다. 막에서 떨어져 나온 DAG가 PKC를 켜고, 그것이 NF-κB를 풀어 준다.
한 줄은 인산화 연쇄다. Ras에서 시작해 AP-1까지 간다.
세 줄이 모두 핵에 도착했다. 셋이 다 와야 문이 열린다.
핵 안에서 NFAT, NF-κB, AP-1이 IL-2 유전자 프로모터에 결합했다.
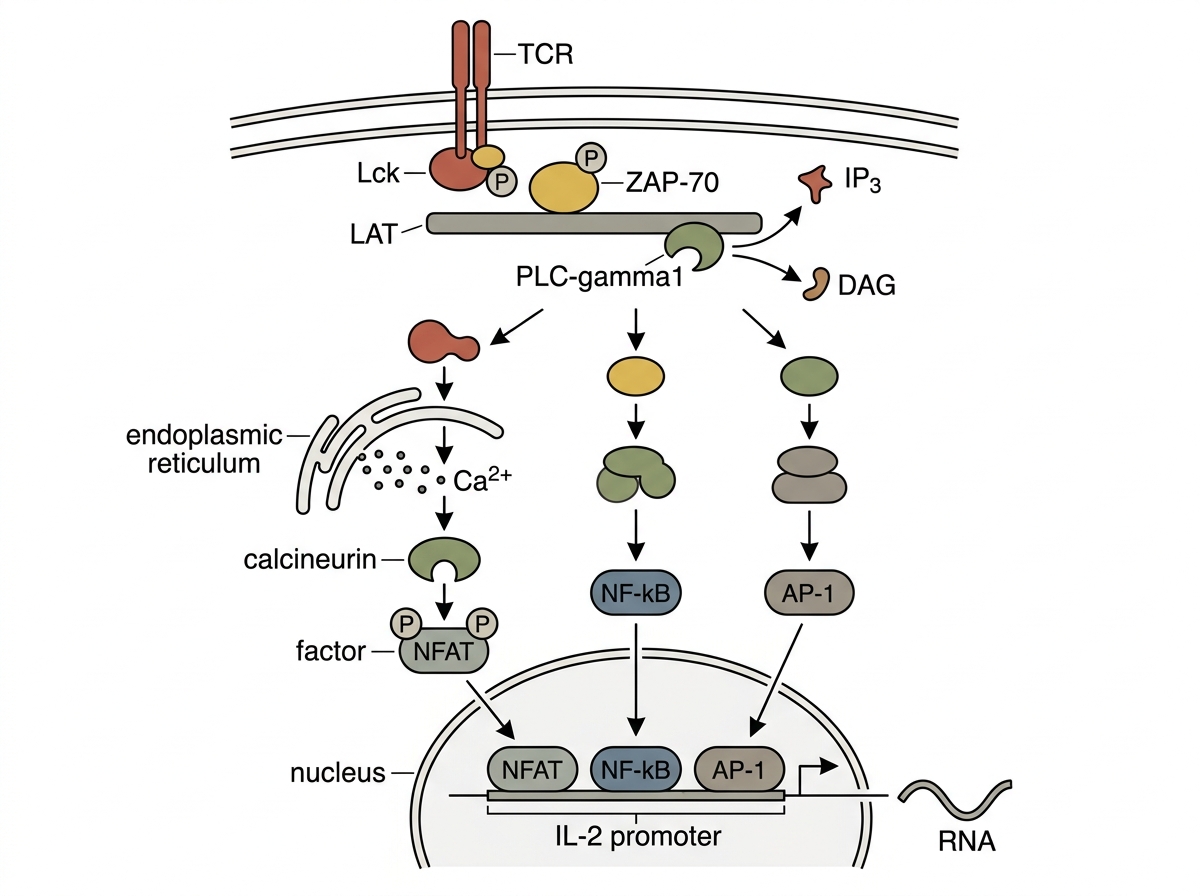
IL-2(인터루킨-2) 유전자의 전사가 시작됐다.
IL-2는 T세포가 스스로에게 보내는 명령이다.
분비된 IL-2가 다른 세포로 가는 것이 아니라 자기 자신의 수용체에 다시 붙는다. 자가분비라고 한다. 분열하라는 명령을 자기가 쓰고 자기가 읽는 것이다.
이 구조에는 뜻이 있다. 명령이 멀리 퍼지지 않는다. 지금 이 자리에서 제 짝을 만난 그 T세포만 늘어난다. 옆에 있던 상관없는 T세포는 늘어나지 않는다.
14 — 11단계: 클론 확장 — 하나가 수십만으로
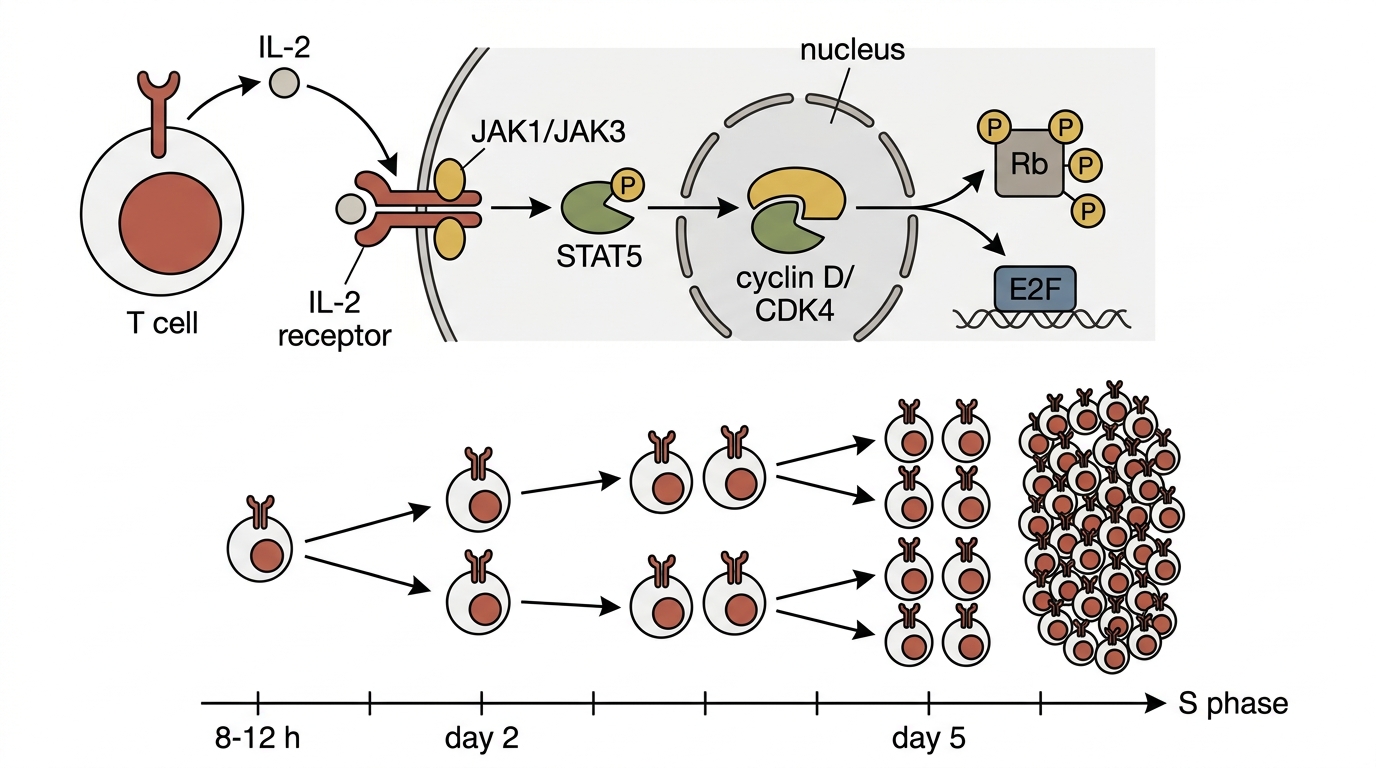
T세포가 분열하기 시작했다.
IL-2가 자가분비 방식으로 T세포 자신의 IL-2 수용체에 결합했다. JAK1과 JAK3가 STAT5를 인산화했다. 사이클린 D와 CDK4가 발현됐다. Rb가 인산화되어 불활성화됐다. E2F가 DNA 복제와 세포 분열 유전자들을 활성화했다.
세포는 아무 때나 분열하지 않는다. 분열로 가는 문 앞에 브레이크가 걸려 있다. Rb라는 단백질이 그 브레이크다.
성장 신호가 오면 사이클린과 CDK가 붙어 Rb에 인산기를 단다. 인산기가 달리면 Rb가 손을 놓고, 그 아래 붙들려 있던 E2F가 풀려난다. E2F가 DNA를 복제하는 유전자들을 켠다.
브레이크를 밟고 있는 것이 기본 상태고, 신호는 그 발을 떼게 할 뿐이다. 암은 대개 이 브레이크가 고장 난 것이다. 로지의 종양도 그랬다.
세포 분열.
한 번의 분열에 약 8~12시간.
1개 → 2개 → 4개 → 8개...
두 배씩 늘어나는 것은 처음에는 느려 보인다. 하나가 둘이 되고 둘이 넷이 되는 동안에는 아무 일도 아닌 것 같다.
스무 번 반복하면 백만 개가 된다.
열 시간에 한 번씩 스무 번이면 여드레다.
클론 확장(clonal expansion).
이틀 후에는 수천 개. 사흘이 되면 수만 개. 닷새가 지나면 수십만 개의 T세포 클론. 모두 동일한 TCR. 모두 SVDGQVYIP-DLA를 인식할 수 있는 클론들.
그리고 그 수십만 개가 전부 같은 TCR을 갖고 있다. 원본 하나를 복사한 것이니까.
면역 기억이라는 말도 여기서 나온다. 나중에 같은 조각을 다시 만나면 처음처럼 한 개에서 시작하지 않는다. 이미 수만 개가 대기하고 있다. 그래서 두 번째는 훨씬 빠르다.

분열하면서 동시에 분화했다. CD8+ 세포독성 T 림프구(CTL)로.
CTL로 분화하는 과정에서 세포독성 과립이 형성됐다. 그 안에 치명적인 무기들이 채워졌다.
퍼포린. 그랜자임 B. FasL. TRAIL.
무기가 넷인 데는 이유가 있다.
퍼포린과 그랜자임은 구멍을 뚫고 독을 넣는 방식이다. FasL과 TRAIL은 상대 세포 표면의 스위치를 눌러 스스로 죽게 만드는 방식이다.
종양 세포는 자주 한쪽을 망가뜨려 피한다. 두 방식을 함께 갖고 있으면 한쪽이 막혀도 다른 쪽이 남는다.
무장이 완료됐다.
15 — 12단계: 혈류를 타고 — 종양을 향한 여정
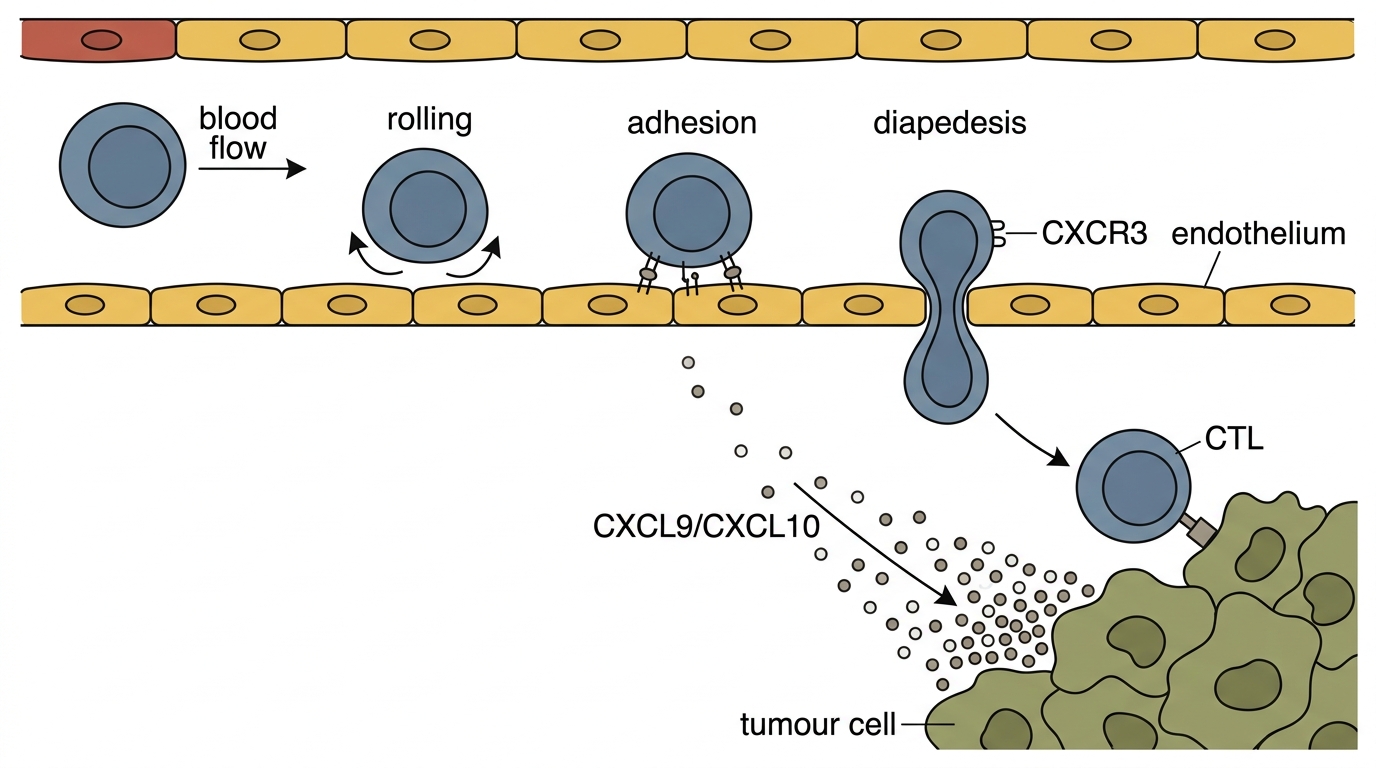
CTL들이 림프절을 떠났다.
림프관 → 흉관 → 쇄골하 정맥 → 혈류.
혈류 속에서 CTL들이 전신 순환에 들어갔다. 표면의 수용체 발현이 변해 있었다. CCR7이 하향 조절되고 CXCR3가 상향 조절됐다. 염증 조직, 즉 종양 부위를 향해 이동하도록 안내하는 변화였다.
나침반을 바꿔 단 것이다.
림프절로 가야 할 때는 림프절 냄새를 맡는 수용체를 달고, 염증 부위로 가야 할 때는 염증 냄새를 맡는 수용체를 단다. 세포가 목적지를 외우고 있는 것이 아니다. 지금 무엇을 감지할 수 있는지가 바뀔 뿐이다.
로지의 왼쪽 뒷다리 위 종양 조직에서 CXCL9, CXCL10 케모카인이 방출되고 있었다. 이것들이 CTL들에게 방향을 알려줬다.
저쪽이다.
CTL들이 종양 주변 혈관에서 이탈 과정을 시작했다. E-셀렉틴이 PSGL-1과 결합해서 구르기. LFA-1이 ICAM-1과 결합해서 강한 접착. 내피 세포 사이 틈으로 밀고 나갔다. MMP로 기저막을 분해했다.
혈관 안은 빠르다. 혈류에 실린 세포가 벽에 그냥 붙기는 어렵다.
그래서 세 단계를 거친다. 먼저 약하게 붙었다 떨어졌다 하며 구른다. 브레이크를 밟듯 속도가 줄어든다. 느려지면 강한 접착 분자가 작동해 완전히 멈춘다. 그다음에 내피 세포 사이를 비집고 빠져나간다.
이 세 단계는 백혈구가 염증 부위로 갈 때 늘 쓰는 방식이다. 종양으로 가는 길도 다르지 않았다.
CTL이 종양 조직으로 침투했다.
16 — 13단계: 표적을 찾아서
종양 조직 안에서 CTL들이 이동했다.
종양 세포들의 표면에는 MHC 클래스 I 분자들이 발현되어 있었다. 그 안에서 지금도 KIT D816V 단백질이 과발현되고 있었다. 그 단백질의 일부가 프로테아솜에서 분해되고, TAP를 통해 소포체로 이동하고, MHC I에 실려 세포 표면에 제시되고 있었다.
여기가 이 이야기 전체가 걸려 있는 자리다.
종양 세포가 KIT D816V 단백질을 많이 만든다는 것은 곧 그 단백질의 조각을 표면에 많이 내건다는 뜻이다. 만들면 잘리고, 잘리면 걸린다. 세포는 제가 만드는 것을 숨길 수 없다.
변이 덕분에 죽지 않고 자란 세포가, 바로 그 변이 때문에 표적이 된다.
SVDGQVYIP-MHC I.
종양 세포가 스스로 자신의 정체를 드러내고 있었다.
CTL의 TCR이 그것을 감지했다. 찰나의 접촉. CDR3와 펩타이드-MHC의 분자 상보성.
CTL이 멈추었다.
17 — 14단계: 세포독성 면역 시냅스와 살상
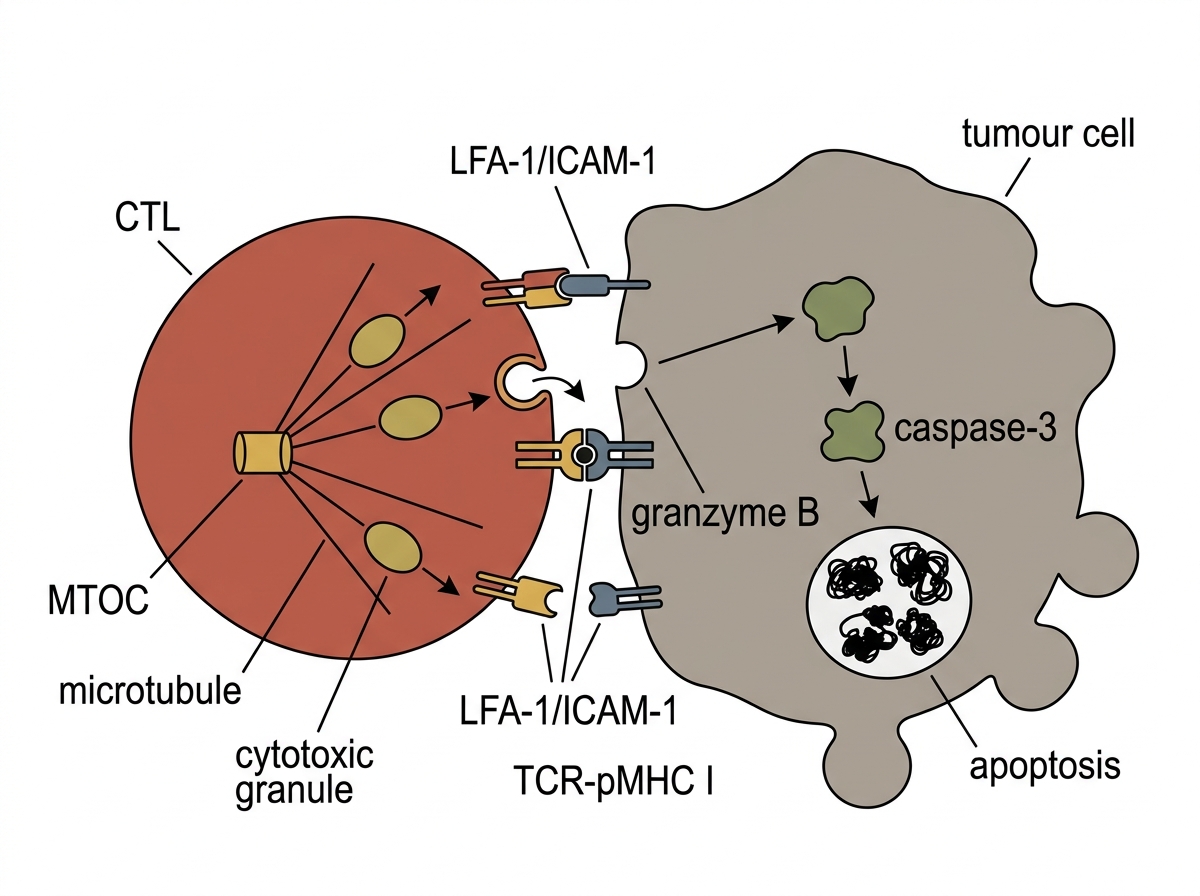
CTL과 종양 세포 사이에 면역 시냅스가 형성됐다. 그러나 이번 시냅스는 T세포 활성화를 위한 것이 아니었다. 이것은 킬러 시냅스였다.
LFA-1이 ICAM-1에 결합해서 두 세포를 붙들었다. pSMAC의 접착 링이 밀폐됐다.
CTL 안에서 세포독성 과립이 극화됐다. MTOC가 면역 시냅스를 향해 이동했다. 미세소관이 재배열됐다. 과립들이 미세소관을 따라 시냅스 막 쪽으로 이동했다.
CTL은 아무 방향으로나 쏘지 않는다.
세포 안의 미세소관은 한 점에서 뻗어 나온다. 그 점이 MTOC다. 표적을 붙잡으면 MTOC가 접촉면 쪽으로 이동하고, 미세소관 전체가 그쪽을 향해 다시 배열된다. 과립들은 그 레일을 따라 접촉면으로 모인다.
총구를 표적에 맞추는 일이다. 옆에 있던 정상 세포는 맞지 않는다.
과립이 CTL 세포막과 융합했다.
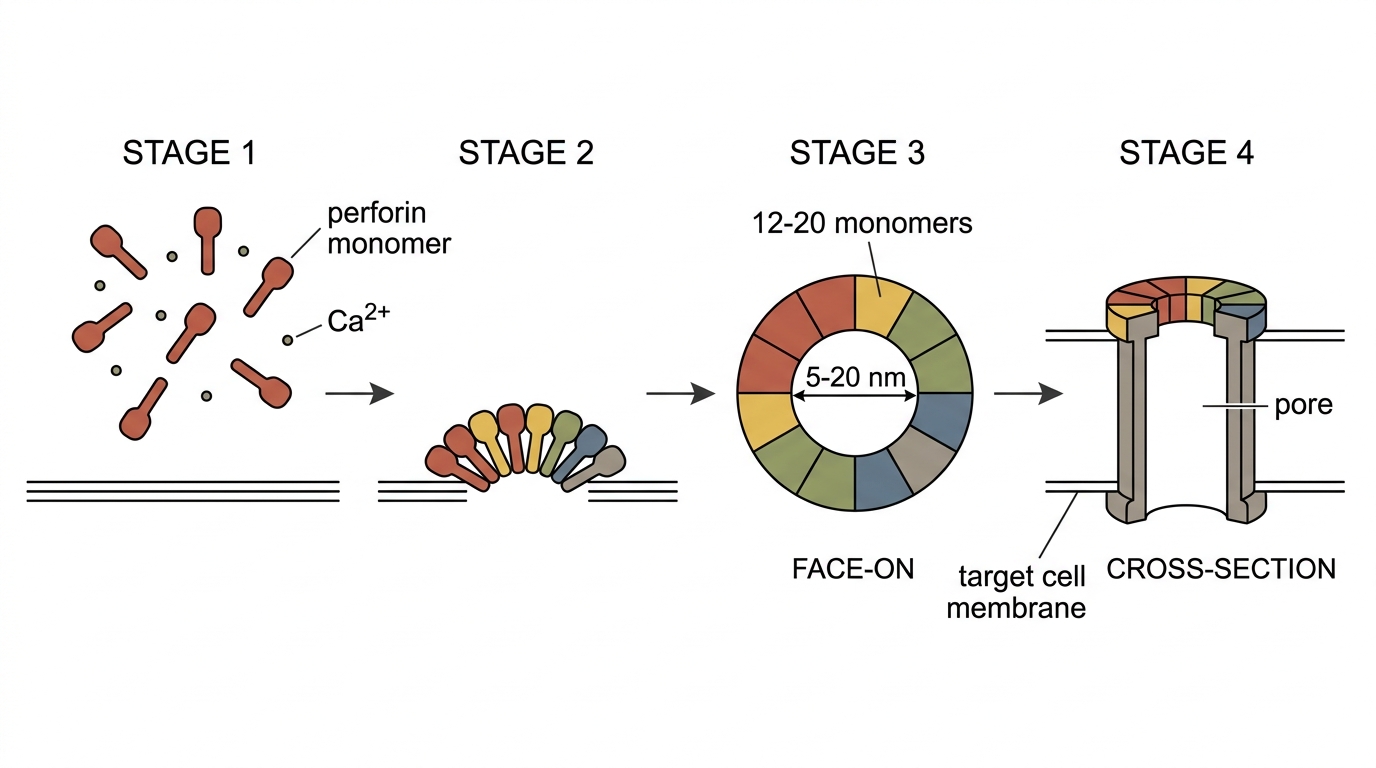
퍼포린이 분비됐다.
퍼포린 단량체들이 두 세포막 사이 공간으로 방출됐다. Ca²⁺이 퍼포린의 중합을 촉진했다. 12~20개의 퍼포린 단량체가 종양 세포막에서 링 구조를 형성했다. 지름 5~20나노미터의 원통형 채널이 생겼다.
퍼포린 하나로는 아무 일도 못 한다. 열댓 개가 모여 고리를 이뤄야 구멍이 된다.
그리고 그 모임에는 칼슘이 필요하다. 칼슘은 세포 바깥에는 많고 안에는 적다. 그러니까 퍼포린은 CTL 안에 있는 동안에는 뭉치지 못하고, 바깥으로 나온 뒤에야 뭉친다.
제 몸을 뚫지 않기 위한 잠금장치다.
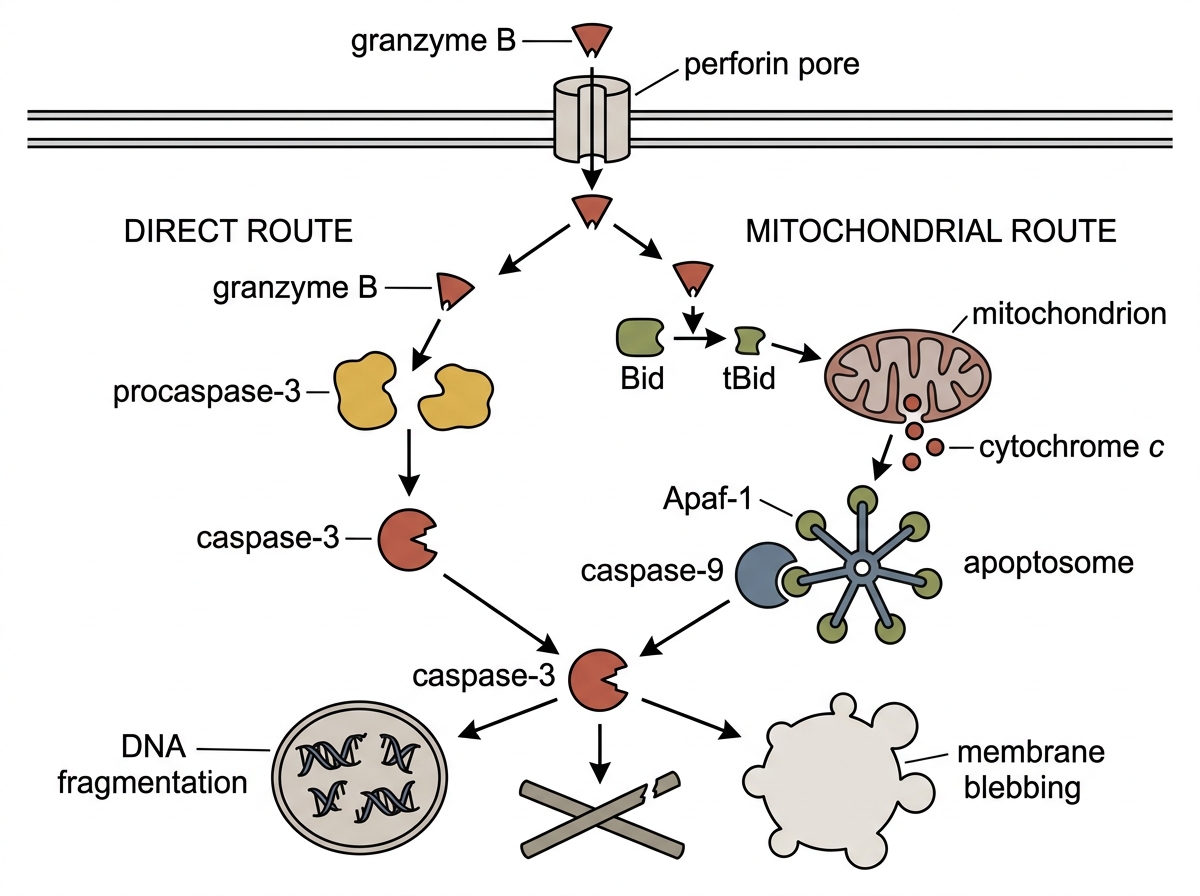
그랜자임 B가 그 구멍으로 들어갔다.
18 — 15단계: 카스파아제의 연쇄 폭발
종양 세포의 세포질로 침투한 그랜자임 B는 즉시 표적들을 찾아 움직였다.
그랜자임 B의 첫 번째 표적은 카스파아제 3이었다.
카스파아제 3는 비활성 전구체 형태로 존재했다. 그랜자임 B가 procaspase-3의 Asp175 뒤를 절단하자, p17과 p12가 분리되며 활성화된 카스파아제 3 이합체가 형성됐다.
카스파아제는 세포가 미리 갖고 있는 자폭 장치다.
어느 세포에나 들어 있다. 다만 잠겨 있다. 잠긴 형태를 프로카스파아제라고 하고, 정해진 자리를 한 번 자르면 풀린다.
그랜자임 B가 하는 일은 그 한 군데를 자르는 것뿐이다. 죽이는 것이 아니라, 이미 있던 장치의 안전핀을 뽑는 것이다.
그래서 빠르다. 새로 만들 것이 없다.
카스파아제 3가 깨어났다.
카스파아제 3가 가장 먼저 공격한 것은 ICAD였다. ICAD가 절단되자 CAD가 해방됐다. CAD가 핵 안으로 이동했다. DNA를 절단하기 시작했다. 뉴클레오솜 단위의 DNA 단편들이 생성됐다.
DNA 사다리 단편화.
핵막 단백질 라민 A와 라민 B가 절단됐다. 핵이 수축했다.
그리고 미토콘드리아 경로도 작동했다. 그랜자임 B가 Bid를 절단했다. tBid가 Bax와 Bak를 활성화해서 MOMP를 유도했다. 미토콘드리아 외막에 구멍이 뚫렸다.
사이토크롬 c가 미토콘드리아 간막 공간에서 세포질로 방출됐다.
사이토크롬 c, Apaf-1, procaspase-9이 세포질에서 만났다. 이들이 조립되어 아팝토솜을 형성했다. 7개의 Apaf-1 분자가 환형으로 배열된 바퀴 구조, 그 중심에 사이토크롬 c, 바퀴살 끝에 procaspase-9.
아팝토솜이 procaspase-9를 활성화했다. 카스파아제 9가 다시 카스파아제 3를 더 많이 활성화했다. 카스파아제 폭포(caspase cascade)가 기하급수적으로 증폭됐다.
길이 두 갈래인 이유도 같다.
하나는 그랜자임 B가 카스파아제 3을 직접 자르는 짧은 길. 하나는 미토콘드리아를 거쳐 훨씬 많은 카스파아제 3을 만들어 내는 긴 길.
짧은 길이 불을 붙이고 긴 길이 증폭한다. 되돌릴 수 없게 되는 지점이 미토콘드리아다. 거기까지 가면 세포는 살아 돌아오지 못한다.
종양 세포의 내부에서 질서 있는 해체가 진행되고 있었다.
19 — 16단계: 아팝토시스 — 조용한 죽음
세포막이 변하기 시작했다.
막의 내측에 존재하던 포스파티딜세린(PS)이 막 바깥쪽으로 이동하기 시작했다. 카스파아제 활성화로 스크람블라아제가 활성화되면서 PS가 외측으로 노출됐다.
PS의 외측 노출은 중요한 신호였다. 나는 죽어가고 있다. 나를 탐식해달라.
세포막의 안쪽과 바깥쪽은 서로 다른 지질로 되어 있다. 포스파티딜세린은 원래 안쪽에만 있다. 그것을 안쪽에 붙들어 두는 효소가 늘 일하고 있기 때문이다.
카스파아제가 그 효소를 끄고, 뒤섞는 효소를 켠다. 그러면 안쪽에 있던 것이 바깥으로 뒤집혀 나온다.
바깥에 나온 포스파티딜세린은 대식세포에게 한 가지 뜻이다. 나를 치워라.
주변 대식세포들이 이 신호를 감지했다.
한편 세포막이 블레빙을 시작했다. 막이 풍선처럼 부풀었다 수축하기를 반복했다. 세포가 여러 개의 아팝토틱 소체로 쪼개졌다.
각각의 아팝토틱 소체는 막으로 완전히 봉인되어 있었다. 세포 내용물이 바깥으로 누출되지 않았다. 이것이 아팝토시스와 괴사의 결정적 차이였다. 괴사는 세포가 터져 염증을 일으키지만, 아팝토시스는 깔끔한 포장 분해였다.
이 차이가 왜 중요한가.
세포가 터지면 안에 있던 것이 조직에 쏟아진다. 몸은 그것을 손상으로 읽고 염증을 일으킨다. 염증은 그 자리를 붓게 하고 아프게 한다.
종양이 한꺼번에 무너질 때 이 일이 크게 일어나면 위험하다. 아팝토시스는 그것을 피한다. 봉지에 담아 내놓고, 청소차가 가져간다.
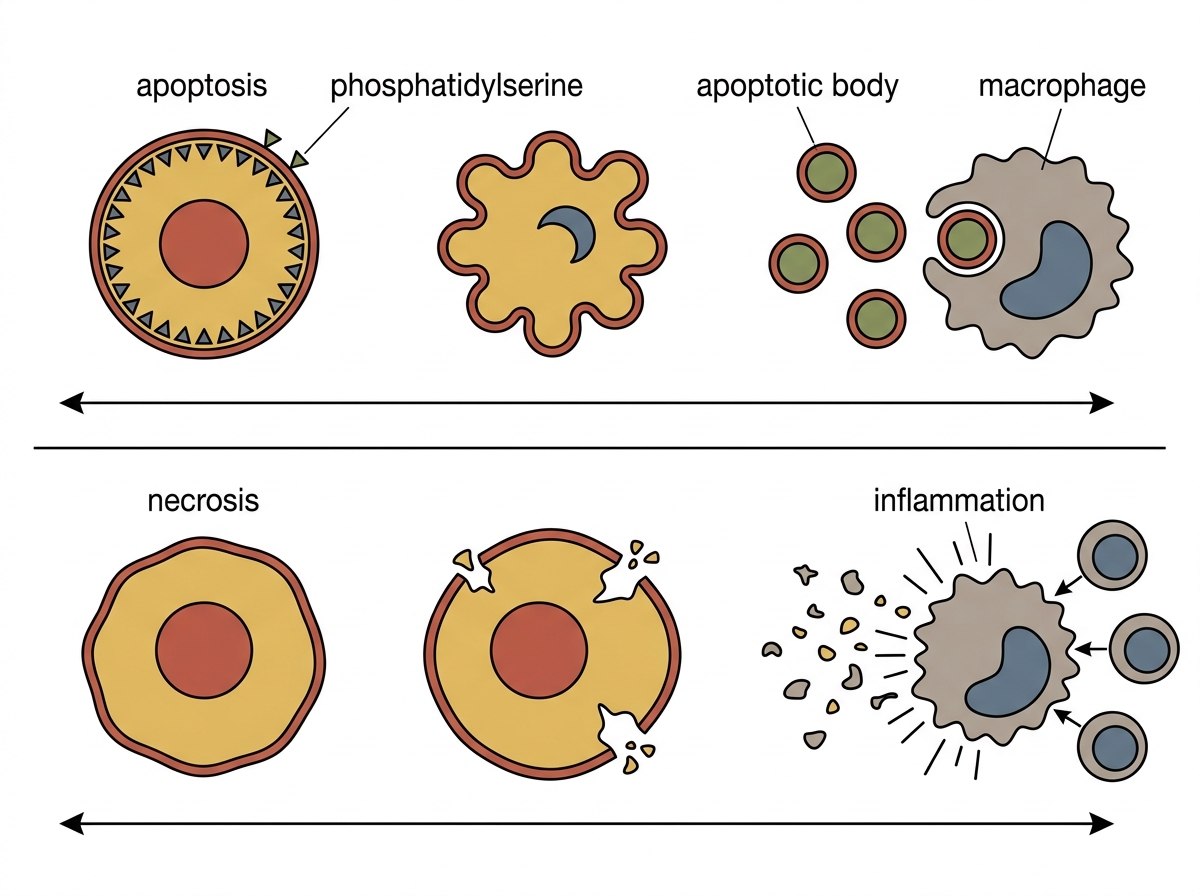
주변 대식세포들이 아팝토틱 소체들을 탐식했다.
종양 세포 하나가 — 소음도 없이, 염증도 없이 — 사라졌다.
그 CTL이 다음 종양 세포로 이동했다.
킬러 세포 한 마리가 수십 개의 종양 세포를 연속으로 처리할 수 있었다.
한 마리가 수십 개를 처리할 수 있는 것도 이 방식 덕분이다. 과립을 다 쓰면 다시 채운다. CTL은 한 번 쓰고 버리는 것이 아니라 재장전되는 도구다.
20 — 17단계: 종양 미세환경의 변화와 에피토프 스프레딩
종양 조직 안에서 CTL들의 활동이 축적되면서, 미세환경 전체가 변하기 시작했다.
죽어가는 종양 세포들에서 DAMP들이 흘러나왔다.
DAMP는 병원체가 아니다. 몸 자신의 부품이다.
원래 세포 안에만 있어야 할 것이 바깥에 나와 있다는 사실 자체가 신호가 된다. 길바닥에 유리 조각이 흩어져 있으면, 유리 자체는 위험하지 않아도 무슨 일이 났다는 것을 알 수 있는 것과 같다.
HMGB1: 핵 안의 염색질 단백질이 세포 밖으로 방출되면서 RAGE 수용체와 TLR2/4에 결합했다. 대식세포와 수지상세포를 활성화했다.
HSP70: 세포 내부의 분자 샤페론이 방출되어 선천 면역 활성화를 유도했다.
ATP: 퓨린성 수용체를 통해 NLRP3 인플라마솜을 활성화하고 수지상세포 성숙을 촉진했다.
이 DAMP들이 종양 주변으로 퍼지며 더 많은 면역 세포들을 불러들였다. 자연살해세포들이 합류했다. 대식세포들이 활성화되어 항종양 M1 표현형으로 분극화됐다.
죽어가는 종양 세포들에서 단백질 파편들이 방출됐다. 수지상세포들이 이 파편들을 탐식하여 교차 제시를 통해 새로운 펩타이드들을 MHC I에 실었다.
교차 제시는 규칙을 하나 어기는 일이다.
원칙적으로 MHC I에는 그 세포가 스스로 만든 단백질의 조각만 실린다. 바깥에서 삼킨 것은 MHC II에 실려 다른 종류의 T세포에게 간다.
그런데 수지상세포는 예외를 갖고 있다. 삼킨 것을 세포질로 빼내 MHC I에 실을 수 있다.
이 예외가 없으면 암 백신은 성립하지 않는다. 종양 세포를 직접 건드리지 않고도 CTL을 만들어 낼 수 있는 것은 이 우회로 덕분이다.
TP53 R248W에서 비롯된 RAHSSHLKSIP. RAS G12D에서 비롯된 VVVGAGGVGK.
처음 백신에 포함됐던 두 번째, 세 번째 신생항원들이 이제 교차 제시를 통해 독립적으로 면역 반응을 점화하기 시작했다.
림프절에서 새로운 T세포 클론들이 활성화됐다.
에피토프 스프레딩(epitope spreading).
백신이 처음 겨냥한 표적은 하나였다. 그러나 면역계는 스스로 학습하며 표적을 확장했다.
처음에 폴이 고른 신생항원은 셋이었다. 그중 하나가 문을 열었다.
문이 열리자 나머지 둘이 따라 들어갔다. 그리고 백신에 들어 있지도 않았던 조각들까지 표적이 되기 시작했다. 죽은 종양 세포에서 나온 것이면 무엇이든 후보가 되기 때문이다.
이것이 면역치료가 화학요법과 다른 점이다. 약은 넣은 만큼만 듣는다. 면역계는 스스로 늘어난다.
그리고 이것이 위험한 점이기도 하다. 표적이 늘어난다는 것은 정상 조직의 무언가가 표적이 될 수도 있다는 뜻이다. 자가면역은 늘 그 옆에 있다.
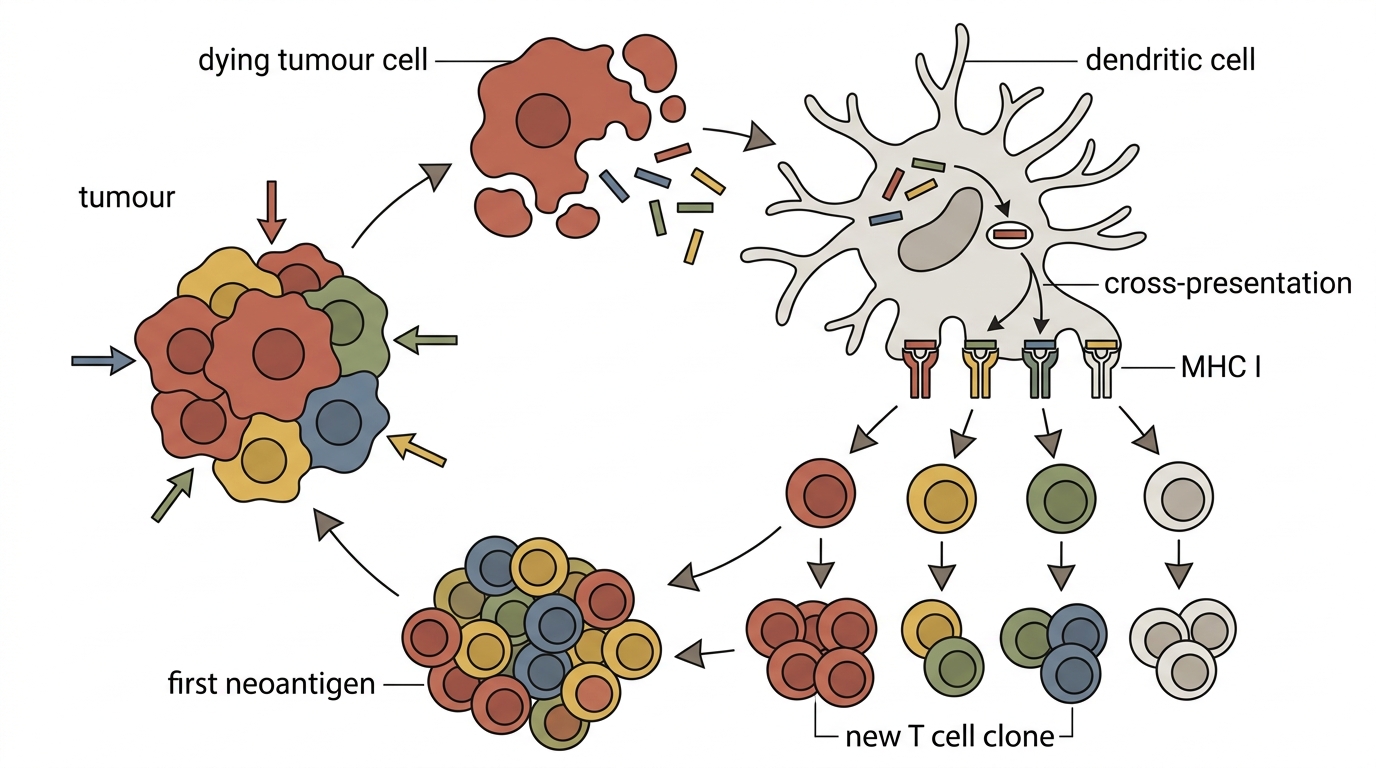
종양은 이제 여러 방향에서 동시에 공격받고 있었다.
21 — 폴의 침묵
처치실 밖 복도에서 폴이 벽에 등을 기대고 서 있었다.
그 모든 과정들이 지금 이 순간 로지의 몸 안에서 진행되고 있었다. 보이지 않지만 실재하는 전쟁.
폴은 눈을 감았다. 로지가 처치실 안에서 라첼 교수 발치에 앉아 있는 모습이 떠올랐다. 그 갈색 눈. 그 이마의 주름.
잘 부탁해, 로지.
이제부터는 자신이 할 수 있는 일이 없었다. 알고리즘도, 파이썬도, AlphaFold도 필요 없었다. 나머지는 로지의 면역계가 할 것이었다. 수억 년 진화가 만들어낸 그 정교한 시스템이.
라첼 교수가 복도로 나왔다.
"다 됐어요."
폴이 눈을 떴다.
"이제 기다리는 일만 남았습니다." 라첼이 말했다. "로지는 잘 견뎠어요."
폴이 처치실로 들어갔다. 로지가 달려왔다. 주사 자국도 없는 것처럼 멀쩡하게, 꼬리를 흔들며.
제14장 — 봄이 돌아오다

1 — 육 주
첫 번째 투여로부터 육 주가 지났다.
육 주라는 간격에는 이유가 있었다.
항암제라면 훨씬 빨리 본다. 약이 세포를 직접 죽이니까, 이 주면 줄어들 것은 줄어든다.
면역치료는 그렇지 않다. 약이 종양을 건드리는 것이 아니라 면역계를 건드리기 때문이다. 그 사이에 여러 단계가 끼어 있다.
주사한 날 수지상세포가 삼킨다. 하루나 이틀 뒤 림프절에 닿는다. 거기서 T세포가 깨어나 일주일에서 열흘 동안 불어난다. 불어난 T세포가 혈류를 타고 종양까지 가는 데 또 며칠. 도착한 뒤에 죽이기 시작한다.
죽은 세포가 치워지고 그 자리가 줄어들어 초음파에 보이기까지, 다시 몇 주.
그리고 함정이 하나 있다.
면역치료 초기에는 종양이 커진 것처럼 보일 때가 있다. 줄어들어서가 아니라 반대다 — T세포와 대식세포가 종양 안으로 몰려 들어가고 부종이 생겨서, 재면 오히려 부피가 늘어난다. 가성 진행이라고 한다.
이 주째에 쟀다면 폴은 종양이 커졌다는 말을 들었을 것이다.
라첼이 육 주를 기다리자고 한 것은 그래서였다.
2026년 1월의 어느 오전, 폴은 멜버른 교외의 한 공원을 로지와 걷고 있었다. 남반구의 한여름 햇살이 공원 잔디를 뜨겁게 달구고 있었다.
라첼 교수가 초음파 화면을 보여준 것은 이틀 전이었다.
2 — 무엇을 재는가
종양의 크기를 잰다는 것은 생각보다 까다롭다.
덩어리는 공이 아니다. 울퉁불퉁하고, 어디까지가 종양이고 어디부터가 부어오른 조직인지 경계가 흐리다. 밖에서 캘리퍼로 재면 위에 덮인 피부와 부종까지 함께 재게 된다.
그래서 초음파로 본다. 안쪽 경계가 보이고, 같은 자리를 다시 찾아 잴 수 있다.
그리고 무엇을 기록할지 정해 두어야 한다. 가장 긴 지름 하나인가, 세 방향을 재서 계산한 부피인가.
국제적으로 쓰는 반응 기준은 가장 긴 지름을 쓴다. 사람은 물론이고 수의종양학에도 같은 방식의 기준이 있다.
지름이 30퍼센트 이상 줄면 부분 반응. 병변이 완전히 사라지면 완전 반응. 20퍼센트 이상 늘면 진행. 그 사이는 안정.
부피가 아니라 지름을 쓰는 데는 이유가 있다. 부피는 세 번 재서 곱해야 하고, 잴 때마다 생기는 작은 오차가 세 번 곱해지면 크게 벌어진다. 지름 하나는 덜 흔들린다.
왼쪽 뒷다리의 종양.
폴은 그 화면을 보는 순간 숨을 멈췄다. 그리고 라첼이 말했다.
"반이 됐어요."
"무엇의 반이요?" 폴이 물었다.
좋은 질문이었다.
"가장 긴 지름이요. 6.5센티미터였던 게 3.4센티미터예요."
지름이 반이면 부피는 팔분의 일이다.
공의 부피는 지름을 세 번 곱한 값에 비례한다. 지름이 절반이 되면 부피는 절반의 세제곱, 그러니까 팔분의 일이 된다.
6.5에서 3.4로 줄었으니 정확히는 칠분의 일쯤이었다. 종양 조직의 일곱 중 여섯이 사라졌다는 뜻이다.
그리고 지름으로 48퍼센트 감소는 부분 반응 기준을 한참 넘어선다. 기준선은 30퍼센트다.
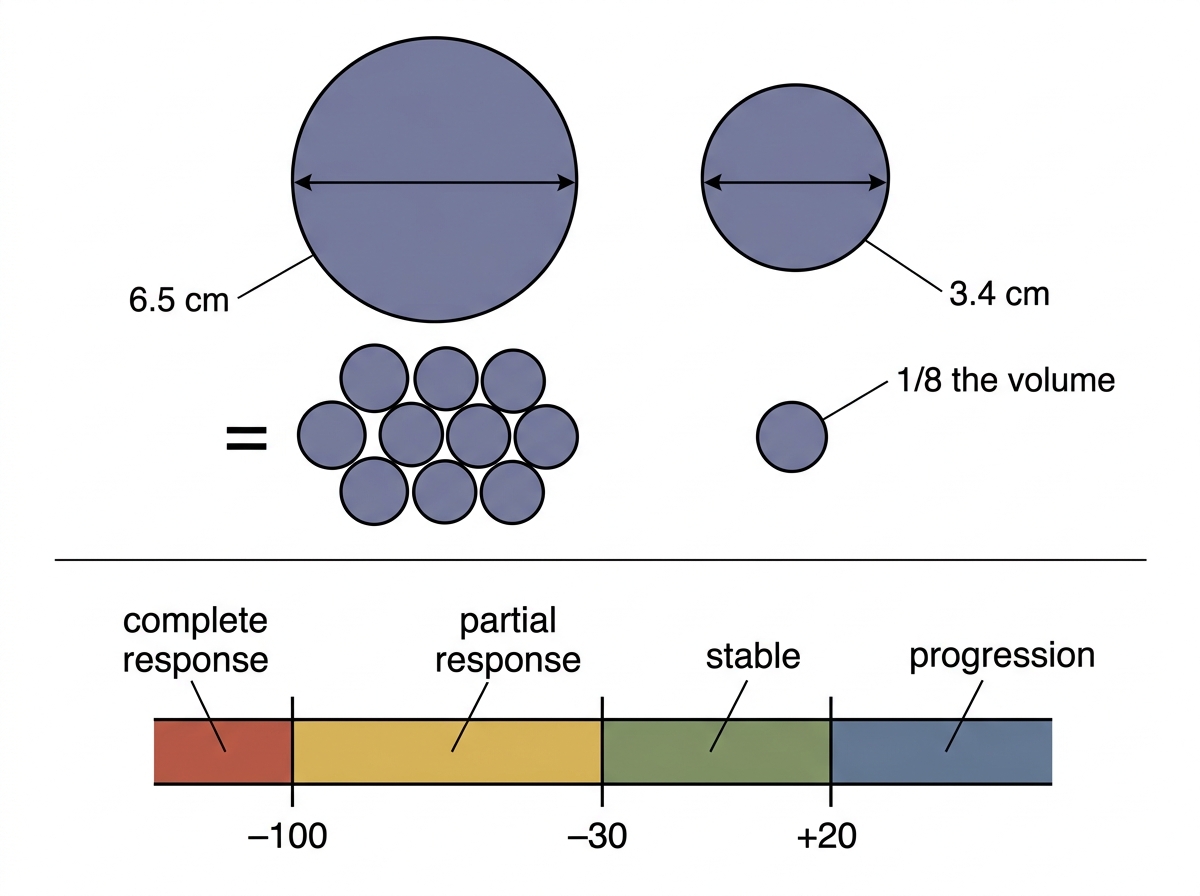
두 달 전 화면과 지금 화면을 나란히 놓으면, 차이가 명확했다. 테니스공이었던 것이 골프공이 됐다.
폴이 쓴 비유는 정확했다. 테니스공의 지름이 6.7센티미터고 골프공이 4.3센티미터다.
두 달 전 로지의 뒷다리 위에 있던 것이 테니스공이었다. 그날 화면에 있던 것은 골프공보다도 작았다.
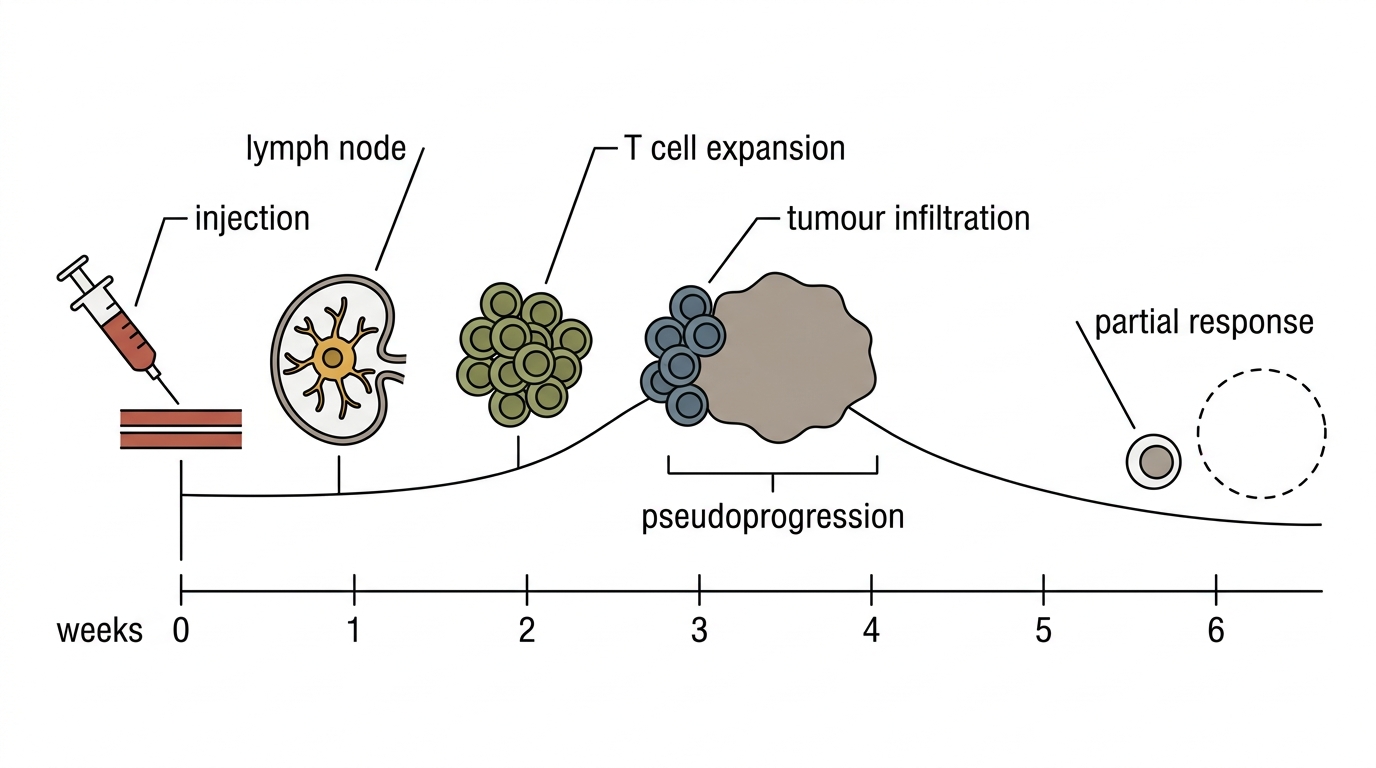
"완전히 사라진 게 아닙니다." 라첼이 조심스럽게 덧붙였다. "하지만 이 속도라면..."
그 문장을 라첼은 끝까지 말하지 않았다. 폴은 이해했다.
3 — 그런데 백신 때문인가
차에 타기 전에 라첼이 한 가지를 더 말했다.
"오늘 제가 말할 수 있는 건 종양이 줄었다는 것까지예요. 백신 때문에 줄었다는 건 아직 말할 수 없어요."
10장의 그 오십 분에서 이미 나왔던 이야기였다. 개가 한 마리다. 비교할 대상이 없다.
생각할 수 있는 다른 설명이 몇 가지 있었다.
하나. 비만세포종은 저절로 줄기도 한다. 드물지만 있는 일이다. 종양이 커지다가 이유 없이 멈추거나 작아지는 경우가 보고되어 있다.
둘. 로지는 앞서 수술과 항암제를 받았다. 실패했다고 판단했지만, 늦게 나타난 효과일 가능성이 완전히 없지는 않았다.
셋. 재는 사람이 결과를 알고 있었다. 라첼은 백신을 놓은 사람이고, 초음파를 보는 사람이고, 이 일이 잘되기를 바라는 사람이었다. 경계를 어디에 그을지가 조금씩 흔들릴 수 있다. 눈가림이 되어 있지 않은 측정은 늘 그 문제를 안고 간다.
넷. 우연. 아무것도 하지 않아도 육 주 사이에 무슨 일이든 일어날 수 있다.
"그러면 무엇이 있으면 백신 쪽으로 기울어요?" 폴이 물었다.
"세 가지요."
첫째, 시점. 반응이 투여 뒤에 나타났고, 면역치료에서 예상되는 시간표와 어긋나지 않았다.
둘째, T세포. 혈액에서 T세포를 꺼내 그 아홉 글자짜리 펩타이드를 보여 줬을 때 반응하는 세포가 있느냐. 라첼은 개용으로 구할 수 있는 시약으로 그 검사를 돌렸고, 투여 전 혈액과 투여 후 혈액을 나란히 놓았다. 투여 후 접시에 점이 더 많았다.
"많다는 건 얼마나요?"
"그걸 물어보시니 좋네요." 라첼이 말했다. "접시 하나에 점 몇 개 차이예요. 저는 이걸 신호라고 부르지 증거라고 부르지 않아요."
셋째, 표적이 아닌 것까지 줄어드는가. 백신에 넣지 않은 항원까지 공격받기 시작하면 그것은 면역계가 스스로 확장했다는 뜻이다. 13장의 에피토프 스프레딩이다. 다만 그것을 로지에게서 확인할 방법은 없었다.
"둘은 맞고 하나는 못 봤어요." 라첼이 말했다. "그래서 저는 이렇게 씁니다 — 백신 투여 후 부분 반응이 관찰되었다. 인과를 주장하지 않는 문장이에요."
폴은 그 말을 들으며 조금 이상한 기분이 들었다.
여섯 달 동안 그가 배운 것 대부분은 무언가를 주장하는 방법이었다. 변이를 찾는 법, 구조를 예측하는 법, 결합을 계산하는 법.
지금 라첼이 가르치는 것은 반대였다. 주장하지 않는 방법.
"그런데 하나는 말할 수 있어요." 라첼이 덧붙였다.
"뭔데요?"
"로지가 좋아졌다는 거요. 그건 원인을 몰라도 사실이에요."
4 — 앞으로 일어날 수 있는 일
그리고 라첼은 앞으로 있을 수 있는 일도 말해 두었다.
종양은 배운다.
면역계가 아홉 글자를 표적으로 삼으면, 그 아홉 글자를 내걸지 않는 세포가 살아남는다. 변이를 잃어버린 세포일 수도 있고, MHC I 자체를 표면에서 내려 버린 세포일 수도 있다. 내걸지 않으면 보이지 않고, 보이지 않으면 죽지 않는다.
그렇게 살아남은 세포들만 남아 다시 자라기 시작하는 것을 면역 회피라고 한다. 항암제 내성과 같은 구조다. 다른 점은, 내성이 생기는 대상이 약이 아니라 면역계라는 것.
T세포 쪽에서도 일이 생긴다. 같은 표적을 오래 마주하면 T세포는 지친다. 반응이 무뎌지고 힘이 떨어진다. 소진이라고 부른다.
그래서 한 번 놓고 끝내지 않는다. 몇 주 간격으로 다시 놓아 클론을 다시 불려 준다. 표적이 셋이었던 것도 여기서 다시 뜻을 갖는다. 하나를 잃어도 둘이 남는다.
"기뻐하되 달력은 계속 보고 있읍시다." 라첼이 말했다.
5 — 공원
공원에서 로지가 갑자기 줄을 당겼다.
저편 수풀에서 토끼 한 마리가 뛰어나왔다. 로지가 달렸다. 줄이 팽팽해졌다가 폴 손에서 미끄러졌다.
로지가 토끼를 쫓아 울타리 위로 뛰어올랐다.
폴은 멍하니 서 있었다.
울타리를 뛰어넘는 그 힘. 네 다리가 공중에서 잠시 모두 지면을 떠난 그 순간. 한 달 전까지만 해도 뒷다리를 끌며 걷던 그 개가 지금 울타리를 뛰어넘고 있었다.
종양이 신경을 자른 것이 아니었다. 눌렀던 것이다.
덩어리가 작아지자 눌려 있던 것이 풀렸다. 그래서 그 다리는 회복된 것이 아니라 돌려받은 것이었다.
폴의 눈이 뜨거워졌다.
그는 웃었다. 기쁨의 웃음이었으나, 또한 깊은 안도의 웃음이었고, 이 모든 것이 여기까지 이어진 것에 대한 경이의 웃음이었다.
"로지!"
로지가 토끼를 포기하고 돌아왔다. 전속력으로 달려와 폴 무릎에 앞발을 올렸다. 폴이 쭈그려 앉아 로지 목을 감쌌다.
로지가 폴 뺨을 핥았다.
제15장 — 무엇을 위한 것인가
1 — 마틴의 질문
마틴 스미스 교수는 논문을 준비하면서 폴에게 물었다.
"당신은 이것이 인간을 위한 것이기도 하다고 생각합니까?"
폴은 잠시 생각했다.
"처음에는 그런 생각 전혀 없었어요. 그냥 로지를 위한 것이었습니다."
"그리고 지금은요?"
"지금도 로지를 위한 것입니다." 폴이 말했다. "그러나 이제는 알게 됐어요 — 로지를 위해 한 일이, 어쩌면 다른 누군가의 로지를 위한 것이 될 수도 있다는 것을."
팔 교수가 나중에 이 대화를 전해 듣고 말했다. "그게 바로 과학이 작동하는 방식입니다."
2 — 민주화라는 말
데이터 민주화(democratization of data)라는 말이 있다.
원래 이 말은 데이터를 다루는 도구들이 전문가의 손에서 벗어나 일반인에게도 접근 가능해진다는 것을 의미했다. 그러나 폴 코닝햄의 이야기는 그 말에 새로운 차원을 더했다.
게놈 시퀀싱 비용이 3,000달러가 된 시대. AlphaFold가 무료로 공개된 시대. ChatGPT가 도메인 지식의 장벽을 낮춰준 시대.
그 시대가 아니었다면, 한 데이터 과학자가 자신의 개를 위한 mRNA 백신을 설계한다는 것은 불가능했을 것이다.
팔 토다르손 교수는 언론 인터뷰에서 말했다. "이것은 개인 맞춤 의료의 민주화입니다. 인간을 위한 것이든 개를 위한 것이든, 원리는 동일합니다."
데이비드 토마스 교수는 말했다. "시민 과학의 새로운 형태입니다. 컴퓨터 과학적 배경을 가진 한 사람이 자신의 기술을 과학적 과정에 투입했습니다."
3 — 그런데 노트북만으로는
이 이야기는 자주 이렇게 요약된다. 한 사람이 노트북으로 자기 개의 암 백신을 만들었다.
그 요약은 절반만 맞다. 그리고 틀린 절반이 위험하다.
폴이 한 일을 정확히 적으면 이렇다. 시퀀싱을 주문했고, 정렬과 변이 호출을 돌렸고, 구조를 예측했고, 신생항원을 골랐고, 서열을 설계했다. 그리고 그 다음부터는 자기 손으로 한 것이 없다.
mRNA를 실제로 합성한 것은 UNSW RNA 연구소였다. 지질 나노입자를 만들고 크기와 봉입 효율을 측정한 것은 팔 토다르손의 실험실이었다. 세포 실험으로 엔도솜 탈출을 확인한 것도 거기였다. 서류를 쓰고 윤리 심의를 통과시키고 주사를 놓은 것은 라첼 알라베나였다.
그리고 그 모든 것 앞에, 대학 하나가 이 일을 해도 된다고 판단한 위원회가 있었다.
노트북 한 대로 되지 않았다.
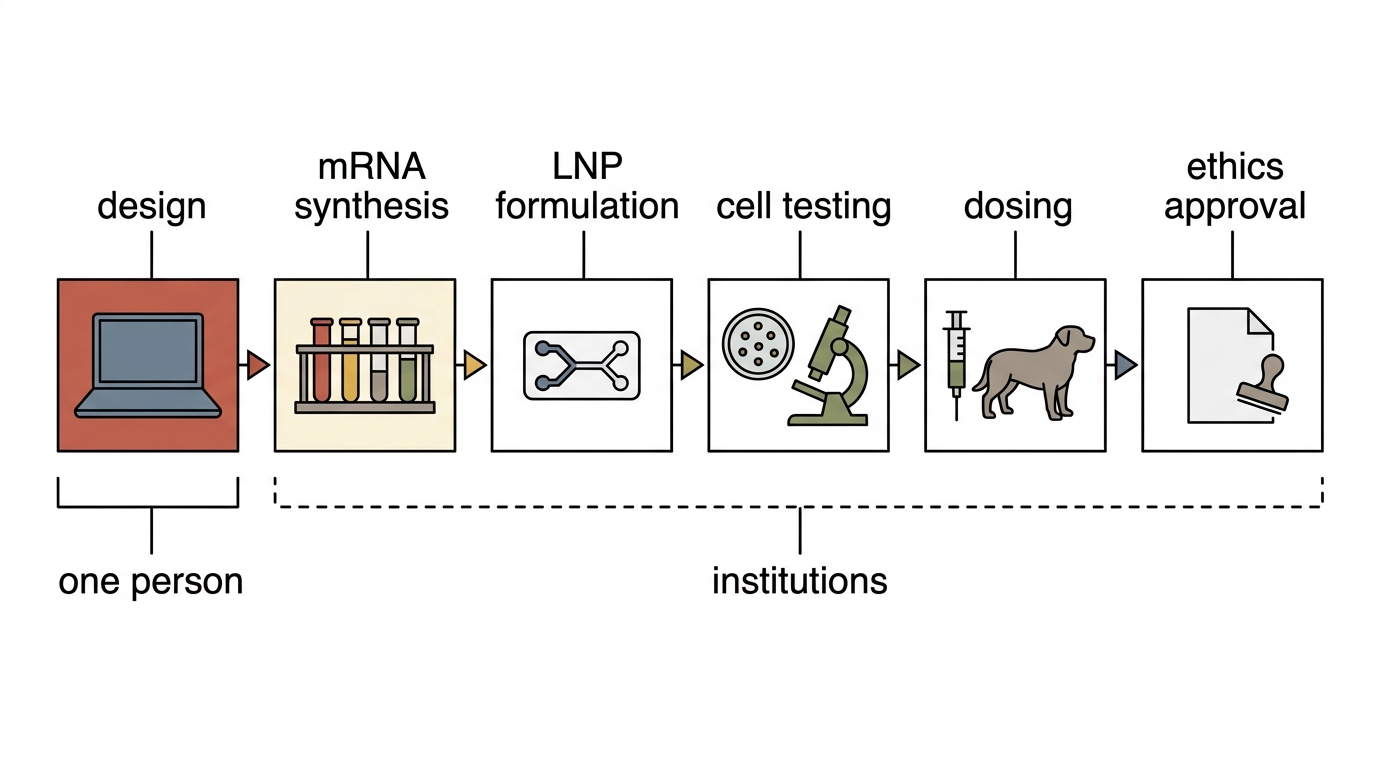
폴이 한 몫이 작다는 말이 아니다. 그 몫은 컸고, 그것이 없었으면 아무 일도 시작되지 않았다.
중요한 것은 어디까지가 혼자 할 수 있는 일이었나이다. 그 경계가 이 이야기의 교훈이다.
설계는 값이 내려갔다. 시퀀싱은 삼천 달러가 됐고, 구조 예측 도구는 무료가 됐고, 모르는 분야로 들어가는 문턱은 낮아졌다.
만드는 일은 값이 내려가지 않았다. 무균 시설, 시약, 장비, 그것을 다뤄 본 손. 이 부분은 여전히 기관 안에 있다.
놓는 일은 값의 문제가 아니다. 판단과 책임의 문제다. 무엇을 감수할지, 잘못되면 누가 답할지.
4 — 위험한 절반
이 이야기를 읽고 자기 개에게 무언가를 만들어 주고 싶어지는 사람이 있을 것이다.
그 마음은 이 이야기의 출발점과 같은 마음이다. 그래서 더 조심스럽게 적어야 한다.
설계까지는 누구나 할 수 있다. 그 다음이 문제다.
제대로 정제되지 않은 mRNA에는 이중가닥 RNA가 섞인다. 몸은 그것을 바이러스로 읽고 강한 염증을 일으킨다. 엔도톡신이 섞이면 그 자체로 위험하다. 입자의 크기 분포를 재지 않으면 무엇을 넣는지 모르는 채로 넣는 것이다.
그리고 무엇이 잘못되는지 알아볼 사람이 옆에 없다.
로지에게 이 일이 가능했던 것은 폴이 똑똑해서가 아니라, 표준 치료가 실패한 뒤였고, 보호자가 위험을 이해하고 동의했고, 수의종양학자가 맡았고, 위원회가 승인했기 때문이다.
그 네 가지 가운데 하나라도 빠지면 같은 일이 아니다.
5 — 다른 누군가의 로지
폴이 마틴에게 한 대답 — 다른 누군가의 로지를 위한 것이 될 수도 있다 — 은 비유가 아니었다.
같은 원리의 치료가 이미 사람에게 시험되고 있었다.
환자의 종양을 시퀀싱해 그 사람에게만 있는 변이를 찾고, 거기서 나오는 신생항원 여러 개를 하나의 mRNA에 이어 붙이고, 지질 나노입자에 담아 근육에 놓는다. 폴이 로지에게 한 것과 같은 순서다.
흑색종에서는 그런 백신이 면역관문억제제와 함께 3상 시험까지 가 있었다. 하나의 mRNA에 신생항원을 서른 개 넘게 담는 설계였다. 췌장암에서는 수술 뒤 재발을 늦출 수 있는지를 보는 초기 시험 결과가 나와 있었다.
원리는 새롭지 않다. 어려운 것은 다른 데 있다.
보통의 약은 한 번 만들어 수만 명에게 나눈다. 이 치료는 한 사람에게 한 번 만든다. 환자마다 서열이 다르므로 배치가 매번 다르고, 그때마다 처음부터 만들고 검사해야 한다.
조직을 떼어 시퀀싱하고, 신생항원을 고르고, 서열을 설계하고, 합성하고, 제형화하고, 품질을 확인해 환자에게 돌아오기까지 여섯 주에서 여덟 주가 걸린다.
그 여섯 주 동안 환자의 암은 기다려 주지 않는다.
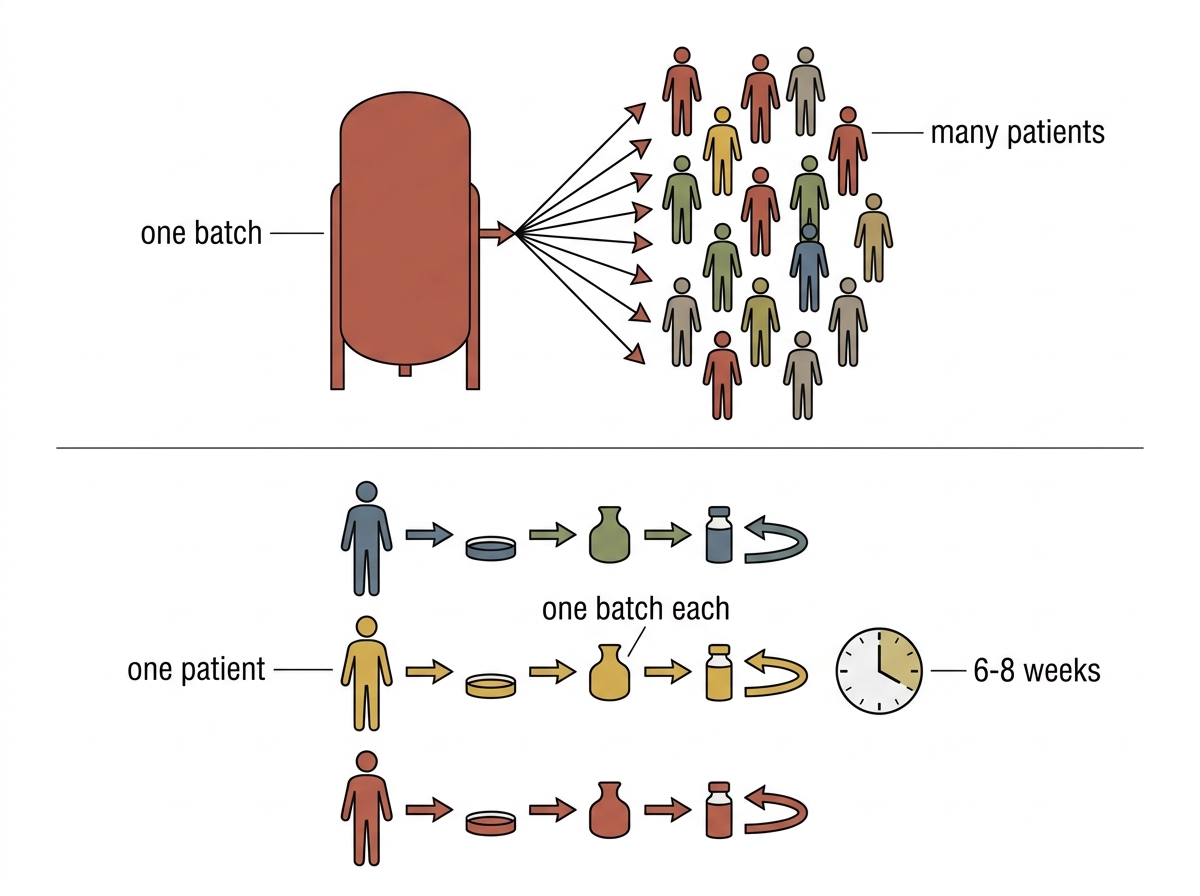
그러니까 이 분야에서 다음에 풀어야 할 문제는 대개 생물학이 아니다. 만드는 시간과 값과 규칙이다.
로지의 경우는 그 문제를 아주 작은 규모에서 한 번 통과해 본 사례였다. 개 한 마리. 여섯 달. 서류 한 벌.
그것이 이 이야기에서 실제로 새로운 부분이었다.
6 — 말할 수 있는 것
그리고 이 이야기가 말할 수 없는 것.
로지 한 마리에게 통했다는 것은 이 방법이 통한다는 뜻이 아니다. 14장에서 라첼이 적은 문장이 이 이야기가 도달한 자리다 — 백신 투여 후 부분 반응이 관찰되었다.
그것을 넘어서려면 개가 여럿이어야 하고, 백신을 받지 않은 개들과 견줘야 하고, 재는 사람이 누가 무엇을 받았는지 몰라야 한다.
그런 시험은 이 이야기 안에 없다.
있는 것은 다른 것이다. 이 경로를 한 사람이 걸어갈 수 있다는 것. 시퀀싱에서 주사기까지, 여섯 달 만에, 전문가 몇 사람의 도움을 받아서.
그 전까지 그것은 확인된 적이 없었다. 이제는 확인됐다.
그 다음 문장을 쓰는 것은 다른 사람들의 몫이다.
6 — 그리고 남는 것
그러나 폴이 가장 인상적이라고 생각하는 것은 다른 것이었다.
알고리즘의 정확도가 아니었다. LNP의 봉입 효율이 아니었다. CTL의 종양 살상 능력이 아니었다.
그것은 보호소 케이지에서 코를 내밀어 그의 손가락을 핥던 로지의 눈빛이었다.
당신이 괜찮은 사람이기를 기대하는 그 눈빛.
그 눈빛에 대한 책임감이 없었다면, 새벽 두 시에 이메일을 보내는 일도 없었을 것이다. 이틀간 잠을 줄이며 데이터를 분석하는 일도 없었을 것이다. 엔도솜 탈출 문제로 새벽 세 시까지 논문을 읽는 일도 없었을 것이다.
과학을 움직인 것은 과학적 호기심이 아니었다.
사랑이었다.
에필로그 — 원반이 다시 날다
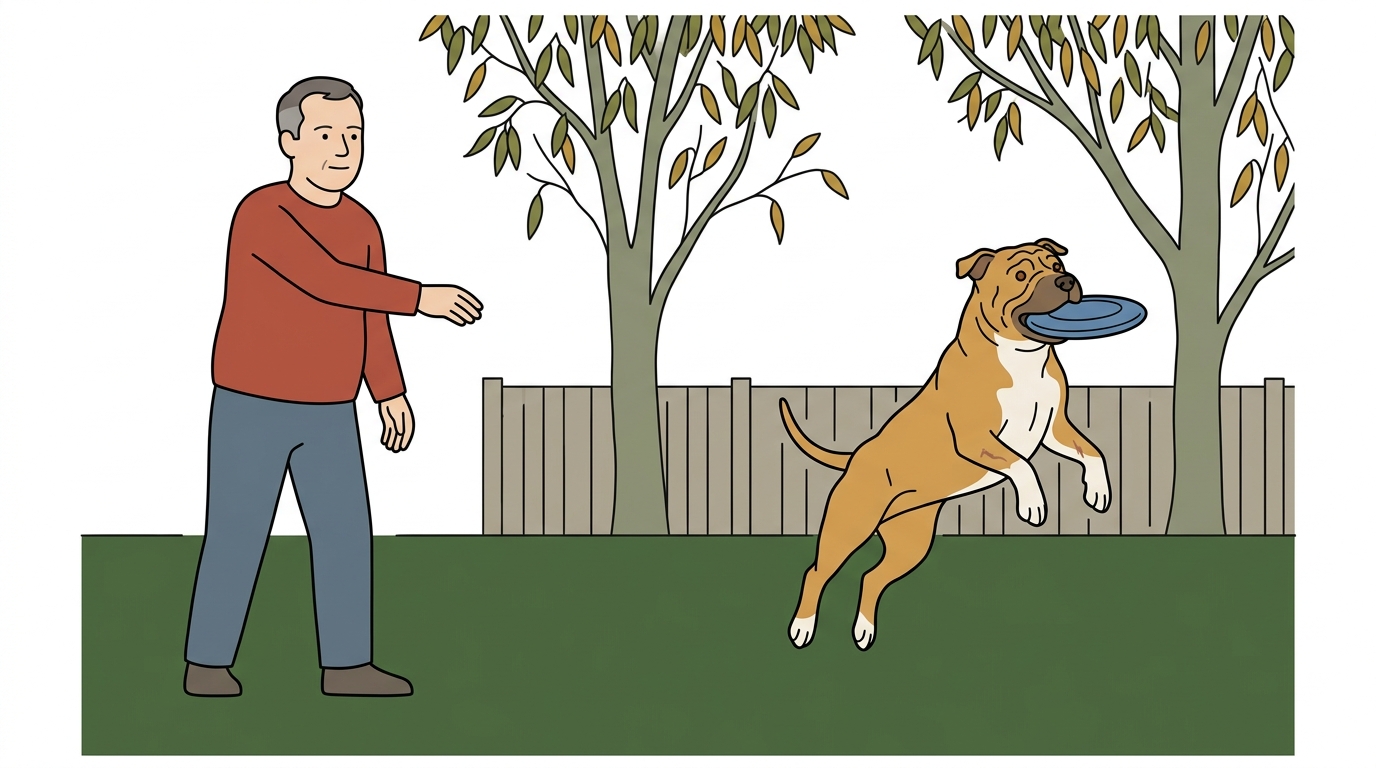
1
2026년 3월. 멜버른의 가을이 막 시작됐다.
뒷마당 잔디는 여름 열기가 빠져나가면서 다시 짙은 초록을 회복했다. 포트 필립만에서 불어오는 바람이 유칼립투스 잎을 살랑이게 했다.
폴이 팔을 뒤로 젖혔다.
파란 원반이 날았다.
로지가 달렸다.
달리는 모습에서 절뚝거림은 없었다. 네 다리가 균형 있게 땅을 박차고, 단단한 몸이 공중으로 솟구쳤다. 주둥이가 원반을 물었다.
착지. 돌아옴. 꼬리의 흔들림.
폴이 쭈그려 앉아 원반을 받으며 로지 목을 감쌌다.
"잘했어, 로지."
로지가 폴 뺨에 코를 비볐다. 따뜻하고 촉촉한 감촉.
멜버른의 가을 햇살이 그 위로 내려앉았다.
2
이 이야기를 쓰면서 한 가지를 생각했다.
인류는 오랫동안 병과 싸워왔다. 그 싸움은 또한 자신의 무지와 싸워온 역사이기도 했다. 보이지 않는 것을 보려 했고, 이해하지 못하는 것을 이해하려 했으며, 막을 수 없다고 생각했던 것을 막으려 했다.
AlphaFold가 단백질 구조를 예측한다. mRNA가 면역계에 설계도를 전달한다. AI가 유전체의 언어를 번역한다. 이것들은 모두 인류가 그 긴 싸움의 과정에서 만들어낸 도구들이다.
그러나 도구는 도구일 뿐이다. 도구를 집어 드는 것은 사람이다. 그리고 사람이 도구를 집어 드는 것은 언제나 무언가를 사랑하기 때문이다.
폴 코닝햄은 한 마리 개를 사랑했다. 그것이, 한 사람이 제 손으로 설계해 제 개에게 놓기까지 간 첫 맞춤형 mRNA 암 백신으로 이어졌다. 같은 원리의 치료가 지금 사람에게서도 시험되고 있다. 두 길은 다른 데서 출발해 같은 곳을 향하고 있다.
역사의 페이지에 기록될 그 기술의 시작점에, 한 마리 개와 한 사내가 뒷마당에서 원반을 던지고 받던 봄날 오후가 있었다.
그것이 나는 좋다고 생각한다.
생명을 사랑하는 곳에서 과학도 시작되기 때문이다.
작가 후기
이 소설은 2024년부터 2026년에 걸쳐 실제로 일어난 사건 — 호주의 데이터 과학자 폴 코닝햄과 그의 개 로지의 이야기 — 을 바탕으로 재구성한 것이다.
기술적 내용 — 전체 게놈 시퀀싱, GATK Mutect2에 의한 소매틱 배리언트 콜링, AlphaFold2를 이용한 단백질 구조 예측, OpenMM 분자 동역학 시뮬레이션, pVAC-Seq를 이용한 신생항원 예측, N1-메틸슈도유리딘을 이용한 IVT, SM-102 기반 LNP 제조, 엔도솜 탈출 기전 — 은 모두 현재 과학 문헌에 기반한 것이다.
다만 LNP의 첫 번째 배치 실패와 SM-102로의 교체라는 극적 위기는, 실제 LNP 개발 과정에서 흔히 발생하는 문제를 극화하여 재구성한 허구의 에피소드임을 밝혀둔다.
로지는 지금도 살아 있다.
2026년 3월, 멜버른에서
주요 등장인물
- 폴 코닝햄 — 데이터 과학자, 멜버른. 기계학습 경력 17년. Core Intelligence Technologies 공동창업자
- 로지 — 스태퍼드셔 테리어 × 샤페이 혼혈견. 2014년 남서부 관목지대에서 구조. 비만세포종 3~4기
- 마틴 스미스 — UNSW Ramaciotti Centre for Genomics 부교수. 계산생물학
- 팔 토다르손 — UNSW RNA Institute 소장. 아이슬란드 출신. 나노의학
- 라첼 알라베나 — UQ 수의학부 교수, 개턴. 개 암 면역치료 전문
- 마리 마에다 — Canine Cancer Alliance 창립자, 캘리포니아
핵심 과학 용어 해설
| 용어 | 설명 |
|---|---|
| 소매틱 배리언트 (Somatic variant) | 태어난 이후 특정 세포에서만 발생한 DNA 변이 |
| KIT D816V | KIT 유전자 816번 위치에서 Asp→Val 치환. 비만세포종의 주요 드라이버 변이 |
| 신생항원 (Neoantigen) | 체세포 변이에서 비롯된 비정상 펩타이드. 면역계의 표적 |
| AlphaFold | 아미노산 서열로부터 단백질 3차원 구조를 예측하는 AI 시스템 |
| DFG-in / DFG-out | 키나아제 활성화 루프의 두 가지 구조적 상태. in=활성, out=비활성. 이마티닙은 out 상태에 결합한다 |
| LNP (지질 나노입자) | mRNA를 세포 안으로 전달하는 나노 크기의 지질 캡슐 |
| SM-102 | Moderna COVID 백신에 사용된 이온화 지질. pKa 6.68 |
| 엔도솜 탈출 | LNP가 세포 내 엔도솜을 탈출하여 mRNA를 세포질로 방출하는 과정 |
| CTL | 세포독성 T 림프구. 바이러스 감염 세포 및 암세포를 직접 파괴 |
| 에피토프 스프레딩 | 면역 반응이 초기 표적 이외의 항원으로 자연스럽게 확장되는 현상 |
© 2026. 이 소설은 창작물이며, 실제 인물 및 기관과의 일치는 사실에 근거한 부분과 재구성된 부분이 혼재함을 명시합니다.